ELOVL2 сприяє прогресуванню раку шляхом інгібування апоптозу клітин нирково-клітинної карциноми
Mar 20, 2022
Анотація. нирковийКлітинна карцинома (РКК) — це агресивна злоякісна пухлина сечостатевої системи, яка пов’язана з поганим прогнозом, особливо у пацієнтів з метастазами, її основними підтипами є світлоклітинний РКР (ccRCC), папілярний ПКК (pRCC) і хромофобний РКР (chRCC). Наявність внутрішньоклітинних ліпідних крапель (LDs) вважається характерною ознакою ccRCC. Важливість зміненого метаболізму ліпідів у ccRCC була широко визнана. Подовження жирної кислоти з дуже довгим ланцюгом (ELOVL) каталізує подовження жирних кислот (ЖК), модулюючи ліпідний склад, і необхідне для нормального функціонування організму. Однак участь елонгаз у РСС залишається неясною. У цьому дослідженні досліджували експресію ELOVL2 у ccRCC; зокрема, високі рівні семи лізоцимів ELOV спостерігалися в первинних пухлинах. Слід зазначити, що підвищені рівні експресії ELOVL2 спостерігалися при ccRCC, а також у pRCC та chRCC. Крім того, вищий рівень ELOVL2 був значно пов’язаний із збільшенням частоти поганого прогнозу у пацієнтів із ccRCC та pRCC. Нокдаун ELOVL2, опосередкований CRISPR/Cas9-, призвів до пригнічення подовження довголанцюгових поліненасичених ЖК і збільшення виробництва ЛД унирковийракові клітини. Крім того, абляція ELOVL2 призвела до придушення клітинної проліферації через індукцію апоптозу in vitro та ослаблення росту пухлини in vivo. Загалом, це дослідження дає нове розуміння механізмів проліферації пухлини, пов’язаних із метаболізмом ліпідів, і припускає, що ELOVL2 може бути привабливою новою мішенню для терапії РСС.
Ключові слова:нирково-клітинна карцинома, ліпідна крапля, клітинна проліферація, нирки, нирки
вступ
Нирково-клітинна карцинома (РКК) є поширеною та смертельною злоякісною пухлиною, на яку припадає ~2 відсотки всіх випадків раку та пов’язаних смертей у всьому світі (1), її основними підтипами є світлоклітинний РКР (ccRCC), папілярний ПКК (pRCC) і хромофобний рак. РКЦ (РКЦ). З усіх підтипів ПКР, ccRCC є найпоширенішим гістологічним проявом, і його патогенез характеризується конститутивною активацією факторів, індукованих гіпоксією (HIF), через втрату функції гена супресора пухлини фон Гіппеля-Ліндау (VHL). (1). Були розроблені різні цільові терапії проти васкулярного ендотеліального фактора росту (VEGF) або інгібіторів сигнальної сигналізації рапаміцину (mTOR) у ссавців та імунних контрольних точок для метастатичного захворювання. Однак у більшості пацієнтів прогресування захворювання неминуче (1,2).
CISTANCHE ПОКРАЩИТЬ ДІАЛІЗ НИРОК/НИРОК
Відмітною ознакою ccRCC є велика кількість внутрішньоклітинних ліпідних крапель (LD), що складаються з нейтрального ліпідного ядра, що містить тригліцериди (TG) і ефіри холестерину (CE), оточених фосфоліпідним моношаром (3). LD є динамічними органелами, відповідальними за поглинання ліпідів. і зберігання та використовуються для підтримки гомеостазу, сприяння виробленню енергії та захисту від різних типів стресу або для підтримки біогенезу мембран під час швидкого росту пухлинних клітин у кількох типах раку (4). Фактично, попередні дослідження продемонстрували, що LDs сприяють ccRCC прогресування (5,6).
Повідомлялося, що жирні кислоти (ЖК), які складають основний компонент ліпідів, служать субстратами для накопичення енергії, синтезу мембран і виробництва сигнальних молекул. Елонгація та десатурація є центральними етапами синтезу довголанцюгових ЖК (LC-FAs) де Ново, довжина та ступінь ненасиченості є детермінантами функції ЖК та метаболічної долі (7). Стеароїл-КоА-десатураза 1 (SCD1), член сімейства жирних ацилдесатураз, була ретельно вивчена в ccRCC (6.8.9). Було продемонстровано, що підвищена експресія SCD1 підтримує життєздатність, тоді як маломолекулярний інгібітор SCD1 (A939572) було показано, що він пригнічує клітинну проліферацію в ccRCC (8.9). Крім того. Yang та ін. (10) продемонстрували, що протеїн 1, що зв’язує регуляторний елемент стеролу (SREBP1), сприяє десатурації ліпідів через кислотну десатуруразу FA 1 (FADSI) до активації передачі сигналу NF-xB для стимулювання клітинної проліферації при ccRCC. Однак будь-яка потенційна роль елонгаз у RCC залишається незрозумілою.
Повідомлялося, що у ссавців початкові реакції конденсації ЖК, що контролюють швидкість, каталізуються сімейством елонгазних ферментів, які називаються подовженням ЖК з дуже довгим ланцюгом (ELOVL). На сьогоднішній день ідентифіковано сім членів ELOVL, які загалом можна розділити на ті, що специфічні для насичених і мононенасичених ЖК (ELOVL1, ELOVL3, ELOVL6 і ELOVL7) або для поліненасичених ЖК (ПНЖК; ELOVL2, ELOVL4 і ELOVL5). Lucarelli та інші (9) виявили значне накопичення ПНЖК і підвищену експресію ELOVL2 і ELOVL5 у ccRCC. Слід зазначити, що було продемонстровано, що системна докозагексаєнова кислота (DHA) виробляється ендогенно та контролює ліпогенез de novo, а також регулює накопичення ліпідів у спосіб, незалежний від транскрипційного фактора 1, що зв’язує регуляторний елемент стеролів (SREBPF1), завдяки абляції ELOVL2 у миші(11). Крім того, було показано, що надмірна експресія ELOVL2 сприяє накопиченню LD з посиленим поглинанням FA як у клітинах лінії преадипоцитів 3T3-LI, так і в клітинах F442A (12). Попередні дослідження in vitro з екзогенним введенням DHA для ракових клітин. продемонстрували, що DHA має протипухлинну, протизапальну та проапоптозну дію на ракові клітини (13-15). Однак будь-яка потенційна роль ELOVL2 у прогресуванні ccRCC через модуляцію метаболізму ліпідів залишається в основному невивченою.
У цьому дослідженні роль ELOVL2 у прогресуванні ccRCC досліджували шляхом виконання транскрипційного профілю первинного ccRCC та нормальногонирказразків, виявивши, що ELOVL2 надмірно експресується в ccRCC і надмірно представлений серед ізоферментів ELOVL. Слід зазначити, що ELOVL2 також був надмірно експресований у ccRCC, а також у pRCC і RCC, що значною мірою пов’язано з поганим прогнозом для пацієнтів із CCR CCR pRCC. Крім того, було продемонстровано, що інгібування ELOVL2 впливає на метаболізм ліпідів і пригнічує клітинну проліферацію через сприяння апоптозу, принаймні частково через порушення гомеостазу ендоплазматичного ретикулуму (ER) урак ниркиклітини. Результати цього дослідження показали, що ELOVL2 може бути потенційною новою терапевтичною мішенню для лікування РСС.
CISTANCHE ПОКРАЩИТЬ НИРКОВУ/НИРКОВУ НЕДОСТАТНІСТЬ
Матеріали та методи
Клітинні лінії та культури. Клітинні лінії 293T (RCB2202) і OS-RC-2 (RCB0735) були придбані в RIKEN BioResource Center, а клітинні лінії 786-O і ACHN були придбані в ATCC; Клітини SK‑RC‑52 були добрим подарунком від DrJ.G.Old (Memorial Sloan Kettering Cancer Center). Лінія клітин RPTEC, отримана з епітеліальних клітин людининирковийпроксимального канальця, було придбано у Lonza Group, Ltd. (CC-2553). Клітини ACHN, 786-O, SK-RC-52 і OS-RC-2 культивували в середовищі RPMI-1640, доповненому 10-відсотковою фетальною сироваткою великої рогатої худоби (FBS) при 37°C з 5-відсотковою зволоженою атмосферою CO2. Клітини 293T культивували в модифікованому Дульбекко середовищі Ігла з додаванням 10 відсотків фетальної сироватки великої рогатої худоби (FBS) при 37˚C з 5-відсотковою зволоженою атмосферою CO2. Клітини RPTEC культивували внирковийсередовище для росту епітелію (REGM™) Bulletkit™ (CC‑3190; Lonza Bioscience) при 37˚C з 5-відсотковою зволоженою атмосферою CO2.
Пацієнти та зразки ccRCC. Тканини ПКР і прилеглі нормальніниркатканини від 46 пацієнтів, які отримали радикальну або часткову нефректомію, були отримані з лікарні Університету Цукуби між 2006 і 2015 роками відповідно до протоколів, затверджених Комітетом з етики Університету Цукуби (схвалення № H28‑104). Усі пацієнти надали письмову інформовану згоду перед операцією. Стадії пухлини були визначені відповідно до стадії TNM Союзу з міжнародного контролю раку (16). Патологічні ступені були класифіковані відповідно до чотирирівневої системи оцінювання Фурмана (17). Усі характеристики пацієнтів підсумовані в таблиці SI. Екстракція РНК і синтез кДНК. Тотальну РНК екстрагували із заморожених тканин інирковийракових клітин за допомогою реагенту TRIzol® (Thermo Fisher Scientific, Inc.). Після очищення РНК РНК була зворотно транскрибована в кДНК за допомогою набору для зворотної транскрипції кДНК високої ємності (кат. № 4368814; Thermo Fisher Scientific, Inc.), згідно з інструкціями виробника.
Кількісна полімеразна ланцюгова реакція зворотної транскрипції (RT-qPCR). Рівні експресії генів кількісно визначали за допомогою машини 7500 Fast Real-Time PCR з Fast SYBR-Green Master Mix (Thermo Fisher Scientific, Inc.). Умови циклу були такими: початкова витримка при 95°C протягом 20 секунд, 40 циклів при 95°C протягом 3 секунд і 60°C протягом 30 секунд, після чого крива плавлення змінювалася від 95°C протягом 15 секунд до 60° C протягом 1 хв. Як внутрішній контроль використовували гіпоксантинфосфорибозилтрансферазу 1 (HPRT1). Усі послідовності праймерів наведено в таблиці SII. Щоб оцінити гени, пов’язані з апоптозом, відносні рівні експресії проапоптотичних генів, Bcl-2-асоційованого X білка (BAX), Bcl-2 гомологічного антагоніста/кілера (BAK), форбол-12-міристату-13- Проаналізовано індукований ацетатом протеїн 1 (PMAIP1/NOXA) і активований модулятор апоптозу p53 (BBC3/PUMA), а також антиапоптотичний ген BCL2 і ген білка диференціювання клітин індукованої мієлоїдної лейкемії (MCL1). Відносні рівні експресії генів кількісно визначали за допомогою методу 2‑ΔΔCq (18).
Вестерн-блот аналіз. Вестерн-блот аналіз проводили, як описано раніше (19). Клітини лізували в буфері для лізису (20 мМ Tris-HCl (pH 7,5), 150 мМ NaCl, 1 мМ EDTA, 1% SDS та інгібітор протеази) і обробляли ультразвуком на льоду. Лізати центрифугували при 1,000 xg протягом 20 хвилин при 4˚C і супернатанти збирали як зразки. Кількісне визначення білка зразків проводили за допомогою тесту Quick Start Bradford Protein Assay (кат. № 5000202JA; Bio-Rad Laboratories, Inc.). Зразки піддавали 10-відсотковому SDS-PAGE, а відокремлені продукти згодом переносили на мембрани PVDF.

CISTANCHE ПОКРАЩИТЬ ІНФЕКЦІЮ НИРОК/НИРОК
Мембрани блокували блокуючим агентом ECL Prime (кат. № RPN418V; Cytiva) протягом 60 хвилин при кімнатній температурі. Потім мембрани інкубували протягом ночі при 4˚C з такими антитілами: антисерин/треонінпротеїнкіназа/ендорибонуклеаза інозитол-вимагаючий фермент 1 (анти-IRE1; 1:200; #3294, Cell Signaling Technology, Inc.), анти-фосфорильований IRE1 (анти-p-IRE1; 1:200; NB100-2323, Novus Biologicals, LCC), гомологічний білок анти-C/EBP (анти-CHOP; 1:200; MA1-250, Thermo Fisher Scientific, Inc. .). Анти-кролячий або антимишачий імуноглобулін G, пов’язаний з HRP, цілі ослині антитіла (кат. № NA934V, NA931VS; GE Healthcare; Cytiva) використовували в 1:10, 000 як вторинні антитіла. Вестерн-блоти візуалізували за допомогою ImmunoStar® Zeta (FUJIFILM Wako Pure Chemical Corporation) за допомогою камери Fujifilm LAS‑4000 і LAS400IR (FUJIFILM Wako Pure Chemical Corporation). ‑актин використовували як внутрішній контроль (1:10 000, кат. № A5316; Sigma-Aldrich).
Біоінформатичний аналіз експресії генів. Клінічні дані та дані РНК-секвенування (RNA-seq) первинних пухлин, зібрані у пацієнтів з раковим раком у базі даних The Cancer Genome Atlas (TCGA), були завантажені з порталу даних Genomic Data Commons (GDC) (20). Всього досліджено 1005 (880 хворих та 125 контрольних) проб, з них 530 хворих та 71 контрольна.нирка нирковакогорта світлоклітинної карциноми (KIRC; ccRCC), 286 хворих і 31 здоровий зразки для шийки маткинирка нирковакогорта папілярно-клітинної карциноми (KIRP; pRCC), а також 64 хворих і 23 здорових зразки для когорти хромофобних нирок (KICH; chRCC). Експресію гена ELOVL2 у зразках раку сечостатевої системи аналізували за допомогою бази даних експресії генів нормальних і пухлинних тканин (GENT2). Дані експресії генів були завантажені з загальнодоступного репозиторію експресії генів (GEO) платформи U133 Plus 2 (GPL570) (http://gent2.appex.kr/gent2/) (21).
Плазміди та лентивірусна трансдукція. Малі шпилькові РНК (shRNA) для ELOVL2, охарактеризовані в попередніх дослідженнях (22, 23), були субклоновані в лентивірусний вектор pLKO.1 (плазміда #8453; Addgene, Inc.). Олігонуклеотидні послідовності, використані для конструювання вектора shRNA, перераховані в таблиці SIII. Лентивіруси були створені в клітинах 293T шляхом спільної трансфекції чотирьох плазмід in trans, включаючи лентивірусний вектор (pLKO‑shControl або pLKO‑shELOVL2), pMDLg/pRRE (плазміда №12251; Addgene, Inc.), pRSV‑Rev (плазміда №12253). ; Addgene, Inc.) і pMD2.G (плазміда #12259; Addgene, Inc.) з використанням реагенту для трансфекції Lipofectamine 2000® (Thermo Fisher Scientific, Inc.). Через 48 годин після трансфекції супернатанти, що містять вірус, збирали та фільтрували через фільтр 0,45 мкм для інфікування. Для вірусної трансдукції лентивіруси pLKO‑shControl або pLKO‑shELOVL2 інкубували з клітинами 786‑O, ACHN і SK‑RC‑52 протягом ночі при 37˚C у зволоженому інкубаторі для культур клітин. Клітини відбирали в присутності пуроміцину через 24 години після зараження. Для стабілізації субклонів клітини культивували в середовищі з пуроміцином протягом 1 місяця при 37˚C у зволоженому інкубаторі для культур клітин, а вцілілі пули використовували для аналізу експресії та проліферації.
Для експериментів із надекспресією клітини OSRC-2 трансфікували порожнім вектором pCMV6 (плазміда #PS100001; Origene Technologies, Inc.) або pCMV6-ELOVL2 (плазміда #RC209232; Origene Technologies, Inc.) при 37°C у зволоженій культурі клітин. інкубаторі, використовуючи реагент для трансфекції Lipofectamine 3000® (Thermo Fisher Scientific, Inc.), згідно з інструкціями виробника. Клітини використовували для зазначених аналізів через 48 годин після трансфекції. Дизайн і клонування CRISPR/Cas9. Плазміда pX330‑U6‑Chimeric_BB‑CBh‑hSpCas9 (pX330) була подарунком від Feng Zhang (Addgene, Inc.; плазміда №42230) (24). Послідовності CRISPR з одним напрямком (sg) для ELOVL2 були спеціально націлені на екзон 2 (sgELOVL2 #1) і екзон 3 (sgELOVL2 #2 і #3) ELOVL2 за допомогою інструменту проектування CRISPR (GE Healthcare Dharmacon, Inc.;‑discovery.com/gene‑editing/crispr‑cas9/crispr‑design‑tool/), перед клонуванням у pX330. Направляюча послідовність CRISPR для керування з однією напрямною (sgControl) була розроблена раніше (25). Олігонуклеотидні послідовності однонаправлених РНК (sgRNA) наведені в таблиці SIII
Потім клітини ACHN висівали в 6-лункові планшети (1,4x10⁵ клітин на лунку) і котрансфікували через 2 години 2 мкг pX330-експресованих sgRNA та 0,2 мкг вектора pCI-neo (Promega Corporation; кат. № E1841) при 37°C у зволоженому інкубаторі для культури клітин, використовуючи FuGENE HD (Promega Corporation; кат. № E2312). Через 24 години після трансфекції 400 мкг/мл G418 застосовували протягом 7-10 днів, і клітинам давали відновитися протягом 2-3 днів. Коли клітини наближалися до злиття, їх розсіювали рідко в чашки розміром 10 см. Через 2 або 3 тижні помітні колонії виділяли за допомогою дисків для клонування (MilliporeSigma; кат. № Z374431-100EA). Індивідуальні клони були розширені та оцінені на нокаутний статус за допомогою секвенування Сенгера для цільової області.

CISTANCHE ПОКРАЩИТЬ БІЛЬ У НИРКАХ/НИРКАХ
Дослідження клітинної проліферації. Клітинну проліферацію оцінювали за допомогою аналізу MTT із набором для підрахунку клітин Cell Counting Kit‑8 (CCK‑8; Dojindo Molecular Technologies, Inc.) відповідно до інструкцій виробника. Коротко кажучи, клітини висівали в 96-лункові планшети та додавали 10 мкл WST-8 через 72 години. OD460 вимірювали після 1-годинної інкубації при 37°C. Підшкірна ксенотрансплантація. Самки мишей BALB/c nude (nu/nu) (n=12; 6-8 тижнів) були придбані в Charles River Laboratories, Inc.. Мишей утримували в умовах, вільних від патогенів, у 12-тижневому режимі. h цикл світло/темрява, з довільним доступом до їжі та води. Для аналізу підшкірного ксенотрансплантата 1x10⁷ клітин, суспендованих у 100 мкл PBS, вводили підшкірно в правий бік за допомогою голки 24G, а об’єм пухлини вимірювали один раз на тиждень. Об’єм пухлини розраховували за формулою: мм3=довжина х ширина х висота х 0,52 (26). Через 90 днів усіх тварин умертвляли, а пухлини ксенотрансплантата видаляли. Тварин анестезували 2% ізофлураном перед евтаназією через вивих шийки матки
Фіксовані у формаліні та залиті парафіном (FFPE) зразки ксенотрансплантатів пухлин розрізали на зрізи товщиною 4 мкм перед депарафінізацією та регідратацією. Для отримання антигену зрізи попередньо обробляли мікрохвильовою піччю протягом 21 хв у буфері лимонної кислоти. Після процедури вилучення антигену активність ендогенної пероксидази блокували 3% H2O2 протягом 25 хвилин, а слайди інкубували з антитілом Ki-67 (1:200; Dako; Agilent Technologies, Inc.; M7240) при 4˚C протягом ночі. Імуногістохімічну реакцію візуалізували за допомогою вторинного антитіла Histofine Simple Stain MAX PO® (Nichirei Biosciences, Inc; кат. № 424151) із застосуванням діамінобензидину як хромогену. Усі дослідження на тваринах були схвалені Комітетом з експериментів на тваринах Університету Цукуби, і всі експерименти проводилися відповідно до вказівок Правил проведення експериментів на тваринах Університету Цукуби (схвалення № 20-370). Аналіз апоптозу. Апоптоз оцінювали за допомогою системи Caspase‑Glo® 3/7 Assay System (Promega Corporation; кат. № G8090), набору для фарбування Annexin‑V‑FLUOS (Roche Diagnostics; кат. № 11858777001) і потенціалу мітохондріальної мембрани JC‑1 Набір для аналізу (Cayman Chemical Company; кат. № 10009172), згідно з інструкціями виробника.
Фарбування ЛД. Клітини висівали на скляні покривні скельця в 60-міліметрові чашки та культивували в середовищі, що містить олеїнову кислоту (200 мкМ), при 37°C протягом ночі в 5-відсотковому CO 2 інкубаторі. Потім середовище відсмоктували, і клітини двічі промивали PBS перед фіксацією 4% формальдегідом (FUJIFILM Wako Pure Chemical Corporation) протягом 5 хвилин при кімнатній температурі. Потім клітини двічі промивали PBS та інкубували з 0,5 мкМ Lipi-Green (Dojindo Molecular Technologies, Inc.) протягом 30 хвилин у темряві при 37°C. Після цього клітини двічі промивали PBS, а покривні скельця встановлювали на предметне скло за допомогою VECTASHIELD® Antifade Mounting Medium з DAPI (Vector Laboratories, Inc.; кат. № H-1200). Зображення пофарбованих клітин були отримані за допомогою флуоресцентного мікроскопа BZ‑X710 (Keyence Corporation). Живі клітини інкубували з 0,5 мкМ Lipi-Green у збалансованому сольовому розчині Хенкса (HBSS) протягом 30 хвилин перед дворазовим промиванням у HBSS, ресуспендували в 1 мМ EDTA/PBS (pH 8,0) з 0,5% BSA і пропускали через клітинний фільтр. . Клітини аналізували на проточному цитометрі Gallios (Beckman-Coulter, Inc.), а дані аналізували за допомогою програмного забезпечення FlowJo v10 (FlowJo LLC).
Фарбування ER трекера. Клітини ACHN (ACHN/sgControl, ACHN/sgELOVL2‑1 та ACHN/sgELOVL2‑2) висівали на скляні покривні скельця в 6{{20}}-мм чашки та культивували при 37˚C протягом 48 годин у 5-відсотковий CO 2 інкубатор. Потім середовище відсмоктували, і клітини двічі промивали HBSS перед фіксацією 4-відсотковим формальдегідом (FUJIFILM Wako Pure Chemical Corporation) протягом 5 хвилин при кімнатній температурі. Потім клітини двічі промивали HBSS та інкубували з 500 нМ ER Tracker Red (Thermo Fisher Scientific, Inc.; кат. № E34250) протягом 2 годин у темряві при 37°C. Згодом клітини двічі промивали PBS, а покривні скла встановлювали на предметні скла. Зображення пофарбованих клітин були отримані за допомогою флуоресцентного мікроскопа BZ‑X710 (Keyence Corporation). Живі клітини інкубували з 500 нМ ER Tracker у HBSS протягом 30 хвилин перед дворазовим промиванням у HBSS, ресуспендували в 1 мМ EDTA/PBS (pH 8,0) з 0,5% BSA і пропускали через клітинний фільтр. Клітини аналізували на проточному цитометрі Gallios, а дані аналізували за допомогою програмного забезпечення FlowJo v10.
Газова хромато-мас-спектрометрія (ГХ-МС). Екстракцію загальних ліпідів із клітинних гранул проводили, як описано раніше (27). Було проведено гідроліз та дериватізацію екстрактів до метилових ефірів FA (FAME). Для внутрішніх стандартів кон’югованих ФА C20:4 (ω‑6), C20:5 (ω‑3), C22:5 (ω‑6), C22:5 (ω‑3) і C22 :6 (ω‑3) FAME були придбані у MilliporeSigma або Cayman Chemical Company. Аналіз ГХ-МС проводили за допомогою GCMS-TQ8040 (Shimadzu Corporation) з колонкою Omegawax® Capillary GC (MilliporeSigma; кат. № 24136). Градієнт температури спочатку збільшувався від 70 до 150˚C зі швидкістю 20˚C за хвилину та від 150 до 280˚C зі швидкістю 8˚C за хвилину, а потім зменшувався з 280 до 200˚C зі швидкістю 15°C. ˚C за хв. Ін'єкцію зразка проводили в режимі без розщеплення з 1,0 мкл введеного зразка. Для МС-аналізу джерело іонів і температура межі розділу були встановлені на 200˚ і 270˚C відповідно. Дані були отримані в режимі повного сканування (30-600 m/z) під напругою іонізації 70 еВ. FAME були ідентифіковані відповідно до часу утримування та електронної іонізації-MS (EI-MS) спектру, що відповідає еталонним стандартам FAME. Відносну кількість FAME розраховували шляхом порівняння середньої площі піку на масу зразка. Кожен зразок незалежно вимірювали тричі.
Статистичний аналіз. Дані виражені як середнє значення ± SD. Усі статистичні аналізи проводили за допомогою програмного забезпечення JMP 10 (SAS Institute, Inc.), GraphPad Prism8 (GraphPad Software, Inc.) або пакету R (версія 4.0.2; RStudio, Inc.). Значущість відмінностей між двома групами оцінювали за допомогою непарного t-критерію Стьюдента або критерію Манна-Уїтні. Значущість відмінностей між трьома або більше групами оцінювали за допомогою однофакторного дисперсійного аналізу з ретроспективними порівняннями з використанням тесту Даннетта або тесту Краскела-Уолліса з наступним тестом Данна ретроспективного аналізу з поправкою Бонферроні. Криві виживання були побудовані за допомогою методу Каплана-Майєра, а різниця між кривими була оцінена за допомогою тесту log-rank. Пацієнти були розділені на дві групи, групу з низькою експресією або групу з високою експресією, використовуючи межу середніх значень експресії. П<0.05 was="" considered="" to="" indicate="" a="" statistically="" significant="">
Результати
ELOVL2 має високу надмірну експресію в ПКР. Велика кількість семи ізоферментів ELOVL у відповідних нормальних і пухлинних тканинах була вперше досліджена в цій когорті, виявивши, що рівні експресії ELOVL1, ELOVL2, ELOVL5 і ELOVL7 були підвищені в тканинах ccRCC (рис. 1A). Щоб підтвердити ці результати, експресію гена ізоферменту ELOVL у відповідних нормальних і пухлинних тканинах досліджували за допомогою бази даних TCGA (когорта KIRC). Було підтверджено, що експресія мРНК ELOVL2 була найбільш високою та значно підвищеною в тканинах ccRCC (рис. 1B; P<0.0001). subsequently,="" elovl2="" mrna="" expression="" was="" investigated="" further="" among="" three="" major="" histological="" subtypes="" of="" rcc="" using="" tcga="" database="" (kirc,="" kirp="" and="" kich="" cohorts).="" this="" revealed="" that="" elovl2="" was="" overexpressed="" in="" the="" prcc="" and="" chrcc="" tissues;="" however,="" its="" expression="" in="" ccrcc="" tissues="" was="" the="" highest="" among="" the="" histological="" subtypes="" (fig.="" 1c).="" moreover,="" the="" elovl2="">

рівні експресії були помітно підвищені в клітинних лініях ACHN, 786-O та SK-RC-52, хоча рівні експресії мРНК у клітинній лінії OS-RC-2 були нижчими порівняно з рівнями клітинної лінії RPTEC (рис. 1D) . Згодом асоційовану з раком зміну експресії гена ELOVL2 при різних типах раку було досліджено за допомогою бази даних GENT2 (рис. 1E). Порівняно з нормальними тканинами експресія ELOVL2 була значно вищою внирка, рак простати, легенів і товстої кишки, тоді як експресія ELOVL2 була подібною при раку сечового міхура або молочної залози. Ці результати свідчать про те, що ролі ізоферментів ELOVL відрізняються залежно від типу раку і що надмірна експресія ELOVL2 може бути пов’язана з канцерогенезом або прогресуванням захворювання ПКР, зокрема ccRCC.
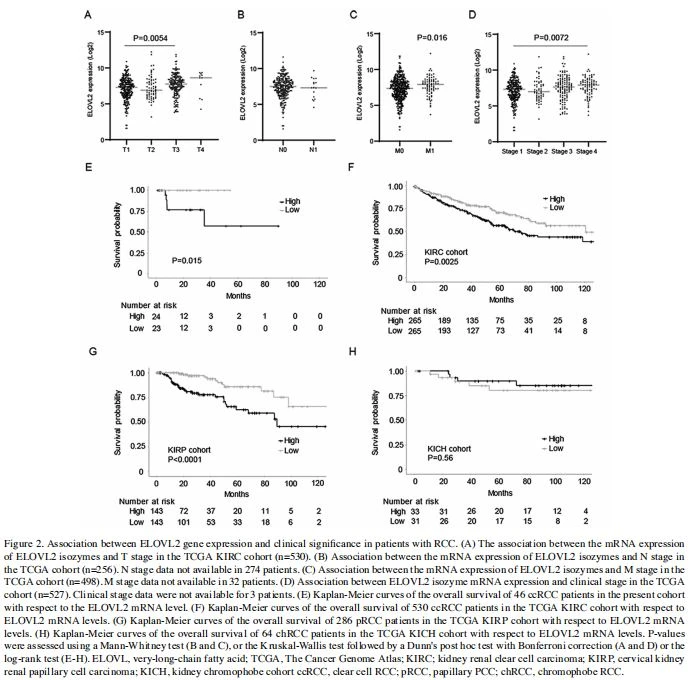
Надмірна експресія ELOVL2 пов’язана з прогресуванням РСС. Був досліджений зв’язок між експресією гена ELOVL2 і стадіями метастазування пухлинного вузла (TNM) у когорті KIRC, щоб з’ясувати клінічне значення ELOVL2 у ccRCC. Експресія ELOVL2 була вищою при локально поширених і метастатичних захворюваннях, хоча її експресія не була пов’язана зі статусом метастазів у лімфатичних вузлах (рис. 2A-C). У сукупності експресія ELOVL2 була збільшена відповідно до клінічної стадії (рис. 2D). Згодом було оцінено зв’язок між експресією ELOVL2 і прогнозом пацієнтів із РСС, щоб з’ясувати клінічний вплив КРР. Відповідно до аналізу Каплана-Майєра було виявлено, що висока експресія ELOVL2 була значною мірою пов’язана з поганим прогнозом у цій когорті (P=0.0015, рис. 2E). Щоб підтвердити ці результати, зв’язок між експресією ELOVL2 і прогнозом пацієнтів із ccRCC було додатково досліджено в когорті KIRC, і було продемонстровано, що аналогічно висока експресія ELOVL2 була суттєво пов’язана з поганим прогнозом (P<0,01, fig.="" 2f).="" moreover,="" a="" high="" expression="" of="" elovl2="" was="" significantly="" associated="" with="" a="" poor="" prognosis="" of="" patients="" with="" prcc=""><0.0001, fig.="" 2g).="" however,="" this="" was="" not="" observed="" in="" patients="" with="" chrcc="" (fig.="" 2h).="" in="" total,="" the="" aforementioned="" results="" indicated="" that="" elovl2="" may="" mediate="" ccrcc="" and="" prcc="" disease="" progression,="" at="" least="">
ELOVL2 сприяє проліферації клітин раку нирок. Щоб оцінити функцію ELOVL2 у проліферації клітин ПКР, було проведено нокдаун shRNA ELOVL2 у клітинах 786‑O, ACHN та SK‑RC‑52. Ефекти кожної shRNA оцінювали за допомогою RT‑qPCR, і було підтверджено значне зниження експресії ELOVL2 (рис. 3A). Потім були проведені аналізи MTT для вивчення впливу нокдауну ELOVL2 на клітинну проліферацію. Було виявлено, що нокдаун ELOVL2 пригнічує проліферацію всіх клітин порівняно з клітинами, трансфікованими контрольною shRNA (рис. 3B).
Навпаки, надмірна експресія ELOVL2 була індукована в клітинах OS-RC‑2, клітинній лінії з нижчою базальною експресією ELOVL2. Ефективність трансфекції оцінювали за допомогою RT-qPCR і підтвердили суттєво підвищену експресію ELOVL2 (рис. 3C). Аналіз MTT виявив, що проліферація клітин із надлишковою експресією ELOVL2 значно посилювалася порівняно з контрольною групою (рис. 3D), що вказує на те, що ELOVL2 може бути промотором проліфераціїнирковийракові клітини.
Абляція ELOVL2 пригнічує ріст пухлини in vivo, синтез ПНЖК і виробництво ЛД внирковийракові клітини. Для подальшого з’ясування ролі ELOVL2 у прогресуванні ПКР була створена лінія клітин ACHN з нокаутом ELOVL2 за допомогою системи CRISPR/Cas9 (sgELOVL2-1 і sgELOVL2-2) (рис. S1). In vitro клітинна проліферація була значно зменшена за допомогою абляції ELVOVL2 у клітинах ACHN (рис. S1). Що ще важливіше, опосередкована CRISPR/Cas9 абляція ELOVL2 пригнічувала ріст пухлини, коли клітини імплантували мишам підшкірно (рис. 4A). Максимальний об’єм підшкірних ксенотрансплантованих пухлин у ACHN/контролі та ACHN/sgELOVL2‑2 на день умертвіння становив 241 і 109 мм3 відповідно. Слід зазначити, що всі пухлини ксенотрансплантата в групі ACHN/sgELOVL2‑1 спонтанно регресували через 14 днів після трансплантації та не були виявлені під час екстирпації. Індекс Ki-67 також досліджували в ксенотрансплантатних пухлинах, трансфікованих контролем або sgELOVL2, і було виявлено, що клітини ACHN/sgELOVL2-2 демонструють значно нижчий індекс Ki-67, ніж ACHN/контрольні клітини (рис. 4B і C). . Ці результати додатково підтвердили можливість того, що ELOVL2 посилює ріст пухлини in vivo. Оскільки ELOVL2 розташований на хромосомі 6p24.2 і кодує трансмембранний білок ендоплазматичного ретикулуму, що контролює подовження C20–C24 ПНЖК (7), загальні рівні ЖК були оцінені в клітинах ACHN/sgControl і ACHN/sgELOVL2 за допомогою аналізу GC‑MS. (Рис. S2). Зміна рівнів LC-PUFA продемонстрована на рис. 4D. ELOVL2 є важливим ферментом в ендогенному виробництві докозагексаєнової кислоти (DHA, C22:6 n-3) (28, 29), і, як і очікувалося, рівні DHA були значно знижені внаслідок абляції ELOVL2 унирковийракові клітини. Крім того,

кількість інших видів LC-PUFAs, включаючи арахідонову кислоту (AA, C20:4 n-6), ейкозапентаєнову кислоту (EPA) і докозапентаєнову кислоту (DPA), також значно зменшилася. З іншого боку, виробництво DPA не змінювалося послідовно в клітинах ACHN/sgELOVL2. Кількість DPA в клітинах ACHN була дуже низькою і не була виявлена в кількох зразках (рис. S2). Оскільки попередні дослідження продемонстрували, що ELOVL2 сприяє накопиченню LD через виробництво DHA (11, 12), зберігання LD було додатково оцінено за допомогою фарбування нейтральних ліпідів. Слід зазначити, що велика кількість LDs у клітинах ACHN/sgELOVL2 була значно зменшена порівняно з клітинами ACHN/sgControl (рис. 4E-4G), що свідчить про те, що зміна метаболізму ліпідів через надмірну експресію ELOVL2 може впливати на проліферацію клітин ПКР.
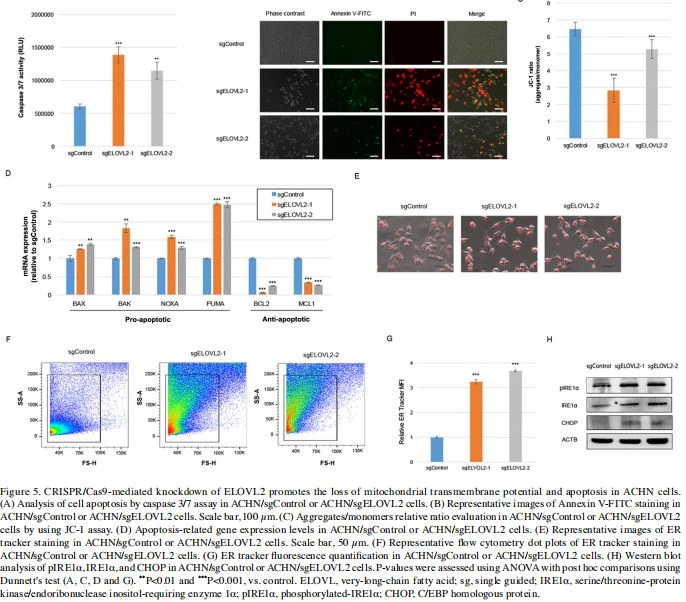
Абляція ELOVL2 індукує апоптознирковийракові клітини. Попередні дослідження показали, що виробництво внутрішньоклітинних ЛД сприяє апоптозу в стресових пухлинних мікросередовищах (4). Таким чином, у цьому дослідженні апоптоз оцінювали в клітинах ACHN/sgControl або ACHN/sgELOVL2, і в клітинах ACHN/sgELOVL2 було виявлено значно підвищену активність каспази 3/7 (рис. 5A). Подібним чином було виявлено більшу кількість апоптичних клітин ACHN/sgELOVL2 порівняно з клітинами ACHN/sgControl, про що свідчить фарбування аннексином V/PI (рис. 5B). Залежно від клітинного стресу, внутрішній апоптоз (30) призводить до втрати потенціалу мітохондріальної мембрани; таким чином, у цьому дослідженні додатково оцінено мітохондріальний трансмембранний електричний потенціал клітин ACHN/sgControl або ACHN/sgELOVL2 за допомогою флуоресцентного JC‑1. Співвідношення агрегат/мономер було значно знижено в клітинах ACHN/sgELOVL2 (рис. 5C), що вказує на стимулювання мітохондріальної трансмембранної поляризації та активації внутрішнього апоптотичного шляху шляхом абляції ELOVL2. Точніше, рівні експресії проапоптотичних генів (BAX, BAK, PUMA і NOXA) були значно збільшені, тоді як рівні експресії антиапоптотичних генів (BCL2 і MCL1) були значно знижені через абляцію ELOVL2 (рис. 5D). Ці результати показали, що ELOVL2 сприяє виживанню клітин через інгібування апоптозу клітин раку нирок
Деградація здатності до зберігання ліпідів у формі LD може призвести до колапсу гомеостазу ER, викликаючи розгорнуту білкову відповідь (UPR) і клітинний апоптоз (4,5). Тому, щоб підтвердити гіпотезу про участь експресії ELOVL2 у гомеостазі ER, фарбування трекера ER було виконано в клітинах ACHN/sgControl або ACHN/sgELOVL2. Подальша візуалізація ER (рис. 5E) і кількісна оцінка за допомогою проточної цитометрії (рис. 5F і G) показали розширення ER у клітинах ACHN/sgELOVL2 через стрес ER. Крім того, абляція ELOVL2 сприяла фосфорилюванню IRE1, активатора датчиків UPR (рис. 5H), тоді як експресіяCHOP, який відіграє основну роль у апоптозі, спричиненому стресом ER, посилювався абляцією ELOVL2 (рис. 5H). У сукупності ці результати продемонстрували, що метаболізм ліпідів, опосередкований ELOVL2, пригнічує апоптоз клітин унирковийракових клітин і припустив, що порушення гомеостазу ER може бути потенційним механізмом індукції.

Обговорення
Дане дослідження продемонструвало, що ELVOL2 може змінювати метаболізм ліпідів і сприяти росту пухлини шляхом інгібування апоптозу клітин раку нирок. Крім того, спостерігалося, що експресія ELOVL2 у тканинах ПКР була підвищеною, і це
більш висока експресія ELOVL2 була значною мірою пов'язана з поганим прогнозом пацієнтів з РСС. Існує обмежена кількість досліджень щодо ролі ELOVL2 у прогресуванні раку (22, 31, 32), і їх результати є суперечливими. Simple та інші (22) продемонстрували, що ELOVL2 сприяє синтезу LC-PUFA, підтримуючи ефективну передачу сигналів EGFR і проліферацію стовбурових клітин гліобластоми. Навпаки, Kang та інші (31) повідомили, що абляція ELOVL2 може сприяти міграції клітин і утворенню колоній клітин раку молочної залози, і показали, що зниження експресії ELOVL2 було пов’язане з гіршим прогнозом для пацієнтів з раком молочної залози. Крім того, Ding та ін. (32) повідомили, що ELOVL2 пригнічує проліферацію клітин нейробластоми та асоціюється зі сприятливими показниками виживання. Відповідно до суперечливих висновків, повідомлених у попередніх дослідженнях, було продемонстровано багаторольову функцію ELOVL2 у прогресуванні раку, яка чітко залежить від типу раку.
Змінений метаболізм ліпідів значною мірою впливає на прогресування раку, ефект, який спостерігається в результатах цього дослідження, узгоджується з дослідженнями, що зображують роль ELOVL2 як основного контролера процесу елонгації LC-PUFAs і критичного ферменту в біосинтезі DHA ( 7). У цьому дослідженні було продемонстровано, що ендогенні ДЦ-ПНЖК,
включаючи AA та DHA, були знижені через абляцію ELOVL2 у клітинах раку нирки. У зв’язку з цим раніше повідомлялося, що інгібування шляху AA інгібіторами ліпоксигенази (LOX) індукує апоптоз і знижує життєздатністьнирковийракові клітини in vitro (33,34). Хоча результати цього дослідження надекспресії ELOVL2 відповідають цим механізмам, однак раніше повідомлялося, що введення DHA може пригнічувати проліферацію та інвазію клітин раку нирок in vitro (35, 36). Однак відомо, що LC‑PUFAs мають чіткий і контрастний вплив на прогресування раку. Таким чином, зміна тонкого балансу між різноманітними LC-PUFAs через інгібування ELOVL2 може бути пов’язана з різними фенотипами, що спостерігаються при різних типах раку. Попередні дослідження продемонстрували, що LDs збільшуються через ендогенне виробництво DHA ELOVL2 у мишей (11,12). Подібним чином було виявлено, що абляція ELOVL2 може пригнічувати вироблення DHA та LD у клітинах раку нирки, що свідчить про те, що надмірна експресія ELOVL2 може сприяти виробленню LD через ендогенне вироблення DHA в РСС. Ракові клітини часто зустрічаються в суворіших (макро- та мікро) умовах навколишнього середовища, включаючи гіпоксію та дефіцит поживних речовин, але все одно швидко ростуть під такими сильними стресовими факторами. Були продемонстровані функції LD в умовах клітинного стресу, такі як підтримка енергетичного та окисно-відновного гомеостазу, регуляція аутофагії, підтримка гомеостазу ER та захист від ліпотоксичності (4).
Акерман та інші (6) виявили, що LDs запобігають накопиченню токсичних, насичених ліпідів під час гіпоксії шляхом буферизації насичення клітинних ліпідів через обмін ненасичених жирних кислот, що знаходяться в ТГ, у ccRCC. Клітинна ліпотоксичність через насичені ЖК (НЖК), включаючи пальмітат (C16:0), може спричинити апоптоз, що призводить до загибелі ракових клітин (37,38). Нещодавно ELOVL2 було визначено як критично важливий фермент для виживання, який допомагає запобігати індукованому глюколіпотоксичністю апоптозу клітин (39). Слід зазначити, що ліпідний розподіл, модифікований віссю ELOVL2/DHA, призводить до нетоксичного використання пальмітату SFA, сприяючи його транспортуванню в мітохондрії для окислення FA (FAO) через CPT1-залежний механізм. Крім того, Балабан та інші продемонстрували, що клітини раку передміхурової залози C4-2B і клітини раку молочної залози MCF-7 захищені від індукованого пальмітатом апоптозу мітохондріальною ФАО (37, 38). Під час ліпотоксичності, спричиненої пальмітатом, клітинні рівні антиапоптотичних білків, включаючи BCL-2 або MCL-1, як повідомлялося, знижуються (40, 41), тоді як повідомлялося про рівні проапоптотичних білків, включаючи PUMA або NOXA. підвищити (42,43). У цьому дослідженні було виявлено, що абляція ELOVL2 може сприятинирковийапоптоз ракових клітин через зміну про- та антиапоптотичних генів подібним чином. Ці результати свідчать про те, що ELOVL2 може захищати клітини від апоптозу, спричиненого ліпотоксичністю, щоб сприяти росту пухлини в ПКР.
Крім того, було продемонстровано, що абляція ELOVL2 при РСС може сприяти підвищенню регуляції ER стресу та CHOP, знижуючи регуляцію BCL‑2 і MCL‑1, водночас посилюючи регуляцію BAK і BAX через мітохондріально-залежний шлях (44). Дійсно, результати цього дослідження продемонстрували, що про- та антиапоптотичні гени були подібним чином змінені за допомогою абляції ELOVL2. Згідно з результатами дослідження Qui та ін. (5), які повідомили, що HIF2/PLIN2-залежні LDs сприяють резистентності до стресу ER і виживанню клітин у ccRCC, ці сукупні висновки підтверджують те, що стрес ER сприяє клітинному апоптозу ELOVL2 абляція внирковийракових клітин, знижуючи LD і видаляючи клітинний буфер проти токсичних ліпідів.

На закінчення, це дослідження вперше продемонструвало, наскільки нам відомо, що ELOVL2 сприяє росту пухлини шляхом інгібування апоптозу через подовження ПНЖК, принаймні частково шляхом підтримки гомеостазу ER внирковийракові клітини. У сукупності було припущено, що індуковані ELOVL2 LDs можуть сприяти прогресуванню раку через численні захисні ефекти проти клітинного стресу в RCC. Крім того, було припущено, що ELOVL2 може бути привабливою потенційною терапевтичною мішенню для пацієнтів з РСС.