Частина 1: Яка роль BDNF в експериментальній та клінічній черепно-мозковій травмі?
Mar 26, 2022
Контакт: Одрі Ху Whatsapp/hp: 0086 13880143964 Електронна пошта:audrey.hu@wecistanche.com
1 секція нейрохірургії, кафедра неврології, Упсальський університет, 75124 Упсала, Швеція;
dfsgustafsson@gmail.com
2 Відділ клінічної неврології, реабілітаційної медицини, Упсальський університет, 75124 Уппсала, Швеція;
andrea.klang@akademiska.se
3 Відділ клінічної нейронауки, Каролінський інститут, 17177 Стокгольм, Швеція; sebastian.thams@ki.se 4 Department of Neuroscience, Karolinska Institute, 17177 Stockholm, Sweden *Кореспонденція: elham.rostami@neuro.u.se
Анотація: Черепно-мозкова травма є однією з головних причин смертності та захворюваності у світі без фармакологічного лікування. Роль BDNF у нервовому відновленні та регенерації добре встановлена, і вона також була в центрі дослідження TBI. Тут ми розглядаємо експериментальні моделі тварин, що оцінюють експресію BDNF після травми, а також клінічні дослідження на людях, включаючи роль поліморфізму BDNF у ЧМТ. Існує велика неоднорідність експериментальних установок і, отже, результати з різними регіональними та часовими змінами експресії BDNF. Кілька досліджень також оцінювали різні втручання для впливу на експресію BDNF після травми. Клінічні дослідження підкреслюють важливість поліморфізму BDNF для результатів і вказують на захисну роль поліморфізму BDNF після травми. Розглядаючи можливість впливу на шлях BDNF за допомогою доступних речовин, ми обговорюємо майбутні дослідження з використанням трансгенних мишей, а також iPSC, щоб зрозуміти основний механізм поліморфізму BDNF при ЧМТ і розробити можливе фармакологічне лікування.
Ключові слова: BDNF; нейротрофіни; нейротрофічні фактори; черепно-мозкова травма; нейрорегенерація; нейропротекція; мозок; нейронів

Цистанхея має дуже хороший нейропротекторний ефект
1. Введення
Травматичниймозоктравми (ЧМТ) є основною причиною смерті в усьому світі, а серед молодих людей віком до 35 років рівень смертності в 3,5 рази перевищує смертність від раку та серцевих захворювань разом узятих [1]. ЧМТ — це динамічний стан із початковим первинним ушкодженням, що викликає вторинні події, які можуть прогресувати протягом годин, місяців і навіть років. Ці події можуть бути шкідливими, наприклад ішемія, енергетична недостатність і запалення, або корисними, наприклад посилення експресіїнейротрофіниі фактори росту, які сприяють виживанню та пластичності нейронів.
Нейротрофіни, зокремаотримані з мозкубуло визначено, що нейротрофічний фактор (BDNF) відіграє важливу роль у клітинних подіях, які відбуваються у відновних процесах після ЧМТ, таких як виживання нейронів, проростання аксонів і синаптогенез [2]. Через важливу роль BDNF його вплив широко досліджували в експериментальних моделях ЧМТ і дослідженнях на людях [3]. Було також показано, що поліморфізм BDNF впливає на результат після ЧМТ, але механізм, що лежить в основі, до кінця не вивчений. Як ми розглянемо в цій статті, також існує розбіжність у результатах експериментальних моделей, що вивчають експресію BDNF, щодо часу після травми, анатомічної локалізації та результату. У цьому огляді ми прагнемо висвітлити результати експериментальних досліджень TBI, що досліджують BDNF, і досліджень на людях, які вивчають вплив поліморфізму BDNF, щоб виявити ключові прогалини в знаннях для подальших досліджень.
1.1. Мозковий нейротрофічний фактор (BDNF)
BDNF є найбільш поширенимнейротрофінвмозок[4,5], відіграючи важливу роль у виживанні, диференціації, синаптичній пластичності та аксональному відростанні периферичних і центральних нейронів у дорослому віці [2,4,6]. BDNF опосередковує свій ефект через високоафінний рецептор тирозинкінази (TrkB) [7]. Підвищена експресія мРНК TrkB була виявлена в місці пошкодження після травми спинного мозку та ЧМТ [8,9]. BDNF також зв’язується з пан-нейротрофіновим рецептором p75NTR, членом сімейства рецепторів фактора некрозу пухлин (TNFR) [10]. Вважається, що рецептор p75NTR відіграє подвійну роль і як фасилітатор опосередкованого Trk виживання нейронів, і як регулятор загибелі нейронних клітин через ініціацію апоптозу. Відповідно, одним із недоліків лікування з використанням аналогів BDNF є те, що вони також впливають на рецептори p75NTR, що опосередковують апоптоз. Таким чином, селективний препарат TrkB або інгібітор p75NTR буде більш корисним.
1.2 Поліморфізм BDNF Val66met
Однонуклеотидний поліморфізм BDNF (SNP) у rs6265 призводить до міссенс-мутації Val66Met (196G/A), яка спричиняє дефіцит залежної від активності секреції BDNF [11]. Мутація Val66Met зустрічається приблизно у 30 відсотків населення США (носії met/met plus). При трансляції молекула BDNF містить три важливі домени: сигнальний пептид, продомен і функціональну молекулу BDNF, усі вони діють на різні рецептори. Зрілий BDNF зв’язується з рецепторами TrkB і сприяє довгостроковій потенціації (LTP), виживанню клітин і утворенню дендритів; тоді як proBDNF зв’язується з p75NTR і активує тривалу депресію (LTD), апоптоз і зменшує складність дендритів. Цей подвійний механізм працює антагоністично і регулює нейропластичність. Мутація Val66Met призводить до накопичення metBDNF у сомі, тоді як valBDNF накопичується в пунктирних везикулах у дендритах. Нейрони не можуть секретувати metBDNF у відповідь на активність, що призводить до порушення пластичності носіїв met.

трава кустарника
2. Поліморфізм BDNF у дослідженнях людини
Найбільш вивченим поліморфізмом BDNF у людей є rs6265 (Val66Met), що стосується нормальної когнітивної функції, впливу на психіатричні, нейродегенеративні та нейрозапальні захворювання та травматичнімозоктравми [11–15]. Це також було у випадку ЧМТ [16,17], хоча було виявлено, що додаткові SNP, такі як rs71244 [18,19], rs1519480, rs7124442 [20] і rs1153659 [21], впливають на результат після травматичногомозоктравма. SNP rs6265 BDNF спричиняє заміну валіну на метіонін, і поширеність гетерозиготних або гомозиготних носіїв метіоніну становить приблизно 30 відсотків населення Сполучених Штатів [22], але варіюється в усьому світі [23]. Більшість досліджень порівнюють гомозиготних носіїв валіну (Met-) з гетерозиготними та гомозиготними носіями метіоніну (Met плюс). Меншість досліджень мають три групи [17,24,25], що відокремлюють гетерозиготи met plus від гомозигот met plus.
Серед здорових людей (середній вік 36 років) носії met-алелі мали гіршу епізодичну пам’ять, виміряну за допомогою тесту робочої пам’яті n-back, а також аномальну активність гіпокампу, оцінену за допомогою функціональної МРТ (fMRI), порівняно з Met- [11]. ]. Подібні результати були показані в іншому дослідженні за участю здорових людей (середній вік 30 років), у якому також вимірювали епізодичну пам’ять і активність гіпокампу за допомогою фМРТ під час тесту [26]. Мет-носії мали на 25 відсотків менше активації областей гіпокампу та гірше розпізнавали «нову» та «стару» інформацію. Цікаво, що існують ознаки того, що бути носієм мети може мати когнітивні переваги під час старіння. Шотландське психічне обстеження 1947 року включало генетичний аналіз і довгострокове спостереження та показало, що носії мет краще зберегли навички невербального мислення у старшому віці (середній вік 79 років) [15], що вказує на те, що носії met можуть зберігати когнітивні здібності. функціонують краще, ніж met-, під час старіння. Переваги також були продемонстровані щодо ризику розвитку хвороби Альцгеймера серед осіб без ЧМТ, де ризик був вищим для Val-гомозигот у більш пізньому віці, але навпаки для молодших суб’єктів [14]. Це узгоджується з теорією позитивного впливу met plus на збереження когнітивних функцій у старшому віці.
2.1. Поліморфізм BDNF та результат після легкої та середньої ЧМТ
Вплив поліморфізму BDNFval66met на ранні когнітивні результати після легкої ЧМТ (mTBI) оцінювали у двох різних дослідженнях і показали гірший результат для носіїв met. При підгострому спостереженні (один місяць) після mTBI як контрольна група Met plus, так і група Met plus TBI мали нижчий час реакції як за часом простої реакції (SRTRT — простий час реакції), так і за швидкістю обробки інформації (виміряної за допомогою Gordon Continuous). Тест обробки (CPT) порівняно з Met-пацієнтами та контрольною групою [17]. Це співвідноситься з іншим дослідженням, де учасники були протестовані в п’яти когнітивних сферах: увага, пам’ять, мова, зорово-просторові та виконавчі функції, одразу після одужання та через шість місяців спостереження [27]. Загалом Met- мав кращі нейрокогнітивні показники, без будь-якої суттєвої різниці між двома часовими точками. Проте носії мети показали значно гірші результати тесту пам’яті через шість місяців, що вказує на погіршення певної сфери когнітивної функції.
Тим не менш, під час спостереження за ветеранами військової служби після mTBI в хронічній фазі (в середньому 4,5 року), оцінюючи пам’ять і виконавчу функцію, група Met plus з ЧМТ мала кращі результати, ніж відповідна контрольна група, тоді як Met- мала протилежні результати. результат [28]. Це може вказувати на те, що наявність Met plus SNP призводить до нижчого базового рівня когнітивних функцій, але забезпечує захисну якість когнітивної функції після ЧМТ.
Ризик длянейродегенераціяпісля ЧМТ обговорювався та оцінювався в різних дослідженнях [29]. Важка ЧМТ асоціюється з вищим ризиком длянейродегенераціяале протягом останнього десятиліття цей зв’язок також був запропонований для легкого ЧМТ [30,31]. Щоб виявити ранні ознаки деменції, об’єм гіпокампу оцінювали за допомогою МРТ в осіб з історією mTBI порівняно з контрольною групою щодо кількох SNP BDNF. Мінорний алель Rs1153659 корелює з вищим ризиком зменшення об’єму гіпокампа після mTBI порівняно з контролем, але не було різниці для rs6265 [21].
У дослідженні, яке вивчало вплив гри головою у футболістів протягом шести місяців на ремієлінізацію, оцінену за допомогою дифузійної тензорної візуалізації (DTI), було показано, що met-носії мали значно меншу ремієлінізацію порівняно з гомозиготними гравцями Val [32]. Це може пояснити частину основної патофізіології поганого функціонального результату після повторних mTBI у футболістів. Можуть існувати гендерні відмінності, як зазначено в Larson-Depuis et al. де жінки-спортсменки з історією струсу мозку мали кращу нюхову функцію, якщо вони були носіями мету порівняно з Val-гомозиготами [25]. Нюхова функція була запропонована як потенційний індикатор структурної та функціональної травми після струсу мозку, а також структурамозоквідомо, що він здатний регенерувати та сприйнятливий до BDNF.
Когнітивний результат після ЧМТ багатофакторний. Вік і стать впливають на результат [18,19,33], а також на тяжкість і типмозоктравма вплине на пізнання. Крім того, психіатричні фактори можуть мати наслідки для когнітивних функцій. Посттравматичний стресовий розлад (ПТСР) все частіше обговорюється як можливий наслідок ЧМТ [34], який у свою чергу може мати вплив на когнітивні функції. В одному дослідженні повідомляється про підвищену поширеність посттравматичного стресового розладу серед пацієнтів Met plus із mTBI [24]. Іншим психіатричним фактором, який може взаємодіяти з когнітивними функціями, є депресія, яка у свою чергу може бути наслідком ЧМТ [35]. Студенти Met plus повідомили про більш високу частоту симптомів депресії після mTBI, про яку вони повідомляли самі, порівняно зі студентами Met- з історією mTBI [36,37]. Різниця була більш помітною серед студенток.
Статеві відмінності, пов’язані з симптомами депресії та тривоги, були додатково розглянуті в дослідженні, яке спостерігало за цими симптомами в групі пацієнтів через один та шість тижнів після mTBI [36]. Це дослідження оцінює інший поліморфізм BDNF і виявило, що чоловіки з т-алелем, відмінним від поліморфізму val66met, мали вищий ризик депресії через шість тижнів, тоді як це не було для жінок. Пацієнти з легкою та помірною ЧМТ в анамнезі та діагностованою депресією по-різному реагували на циталопрам, залежно від BDNF rs6265, де найкраще відповідали вал-гомозиготи [38].

переваги cistanche
2.2. Поліморфізм BDNF і результат при важкій ЧМТ
Можна було ідентифікувати лише одне дослідження, яке вивчало вплив поліморфізму BDNFval66met на раннє відновлення після важкої ЧМТ [39]. Bagnato та ін. оцінили когнітивні функції 53 пацієнтів у вегетативному стані після важкої ЧМТ за допомогою шкали рівнів когнітивних функцій Ранчо. Тест проводився через 1-, 3-, 6- і 12- місяців після травми, і не було виявлено жодної різниці між met-носіями порівняно з Met-.
Є кілька досліджень щодо віддалених результатів після важких, проникаючихмозоктравми в американських ветеранів В’єтнаму, де вивчалася кореляція поліморфізму BDNF і когнітивного результату [16,20,40]. Подальше спостереження за цими дослідженнями відбувається через 40 років після ТБ I. Два з них вивчали вплив поліморфізму BDNF на IQ і виконавчу функцію у ветеранів із проникаючим ЧМТ у префронтальну кору (PFC). Обидва виявили збережену когнітивну функцію у носіїв met з ЧМТ порівняно з носіями не met [16, 40]. У третьому дослідженні були включені всепроникаючі поранення без переваги ПФК [20]. У цьому дослідженні не було виявлено суттєвої різниці між групами для SNP rs6265, але два інших SNP BDNF мали значний вплив на IQ, rs1519480 і rs7124442. Це може вказувати на те, що існує захисний ефект поліморфізму BDNF після травми, і може бути синергічний ефект з різними анатомічними регіонами.
У трьох дослідженнях для оцінки загального результату та смертності після важкої ЧМТ використовувався показник генного ризику на основі «ризикових» BDNF SNP (rs6265 і rs 7124442) [18,19,33], скоригованих на вік. Два дослідження показали нижчу смертність протягом першого року (8–365 днів) після ЧМТ серед молодшого населення (<45 and=""><48 y)="" with="" the="" low="" gene="" risk="" score="" (ie="" met-="" and="" rs7124442="" t-homozygote),="" whilst="" the="" older="" population="" with="" low="" gene="" risk="" score="" had="" higher="" mortality="" [18,33].="" the="" third="" study="" had="" similar="" results="" where="" lower="" age="" had="" a="" higher="" rate="" of="" survival="" at="" six="" months="" with="" a="" low="" gene="" risk="" score,="" though="" these="" results="" were="" to="" some="" extent="" influenced="" by="" levels="" of="" csf="" cortisol="" as="" well="">
2.3. Рівні BDNF в лікворі та плазмі після ЧМТ
Можна виділити три дослідження, у яких вимірювали рівні BDNF у плазмі та/або лікворі. Саймон та ін. проаналізували рівні BDNF у плазмі при надходженні до відділення інтенсивної терапії в середньому через 6,4 години після прибуття до лікарні після важкої ЧМТ у 120 чоловіків (Шкала коми Глазго (ШКГ) 3-8). Не було кореляції між рівнями BDNF у плазмі та короткостроковими летальними наслідками (смертність у відділенні інтенсивної терапії проти виписки з відділення інтенсивної терапії) або між ізольованимимозоктравма проти мультитравми [41]. У 12 дітей із важким ЧМТ рівні BDNF у спинномозковій рідині та плазмі через 2 та 24 години після травми не спостерігали кореляції зі шкалою результатів Глазго (GOS) при виписці [42], хоча був різкий пік BDNF після голови травматизації з усіх предметів. Інше дослідження, яке включало 315 пацієнтів із тяжкою ЧМТ, показало зв’язок між рівнями BDNF у СМР та рівнями кортизолу в СМР протягом першого тижня після травми та 6-місячною смертністю [19]. Подібним чином, високі рівні CSF BDNF, що відбиралися щодня протягом першого тижня після травми, були пов’язані з підвищеною смертністю (8–365 днів після травми), тоді як гостра смертність (0–7 днів) була пов’язана з низьким вмістом сироватки крові рівні BDNF [33].
Дослідження впливу поліморфізму BDNF val66met відрізняються за результатами, часом і типоммозоктравма. Як правило, дослідження невеликі, і більшість досліджуваних популяцій не перевищує 200 осіб. Як наслідок, проспективних досліджень мало, а результати неоднорідні. Поширеність met/met серед європеоїдної популяції низька, тому більшість досліджень групують met-гетерозиготи та met-гомозиготи разом для аналізу.
переваги пустелі cistanche: запобігтимозоктравма
3. Експериментальна ЧМТ
У цьому розділі ми підсумовуємо поточні знання про експресію BDNF після травмимозоктравми (ЧМТ) у різних моделях тварин, а також кореляція між новими варіантами лікування ЧМТ та експресією BDNF, а також їх вплив на поведінкові результати. У розділі оцінки експресії BDNF після ЧМТ порівняно з фіктивними ми вирішили виключити дослідження, у яких не було чітко вказано місце чи час аналізу BDNF, а також ті, у яких не повідомлялося про дані фіктивних тварин.
3.1. Експериментальні моделі тварин
Більше десяти різних моделей травми було використано для вивчення експресії BDNF після ЧМТ (рис. 1), і найбільш обраним методом був контрольований кортикальний вплив (CCI), за яким йшли моделі перкусії рідиною (FPI) і моделі падіння ваги. Жодне дослідження не аналізувало, чи різні моделі травм по-різному впливають на експресію BDNF. Обрана модель визначалася тим, який тип травми потрібно було імітувати, наприклад, тупа сила або проникаюче поранення. Ми спробували зробити висновки щодо впливу різних типів травм на експресію BDNF, але в розглянутому матеріалі були суперечливі результати. Як приклад, Colak et al. використовували контрольовану модель кортикального впливу, тоді як Wang et al. використали рідинну модель перкусії та виявили, що травма збільшила експресію мРНК BDNF у першу добу після травми (DPI) у кортикальній тканині іпсилатерально до травми [43,44]. З іншого боку, Boone et al. також використали рідинну перкусійну модель і виявили зниження експресії мРНК BDNF в іпсилатеральному гіпокампі через 20 годин, але це не суттєво вплинуло на експресію через 4, 8, 16 і 24 години після травми [45]. Підсумовуючи, щоб зробити остаточні висновки, необхідно провести дослідження, яке конкретно аналізує вплив різних моделей на експресію BDNF.
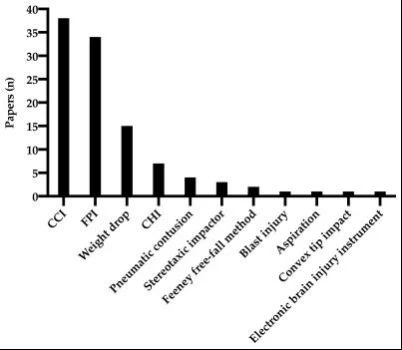
Рисунок 1. Моделі травми в розглянутих дослідженнях.
3.2. Анатомічні області аналізу BDNF
У розглянутому матеріалі аналізовані анатомічні ділянки дуже різноманітні. Щоб порівняти та вивчити тенденції в опублікованих даних, анатомічні області були згруповані разом (рис. 2). Дослідження, що аналізують різні регіони, наприклад, як іпсилатеральний, так і контралатеральний гіпокамп (HC), підраховувалися окремо для кожного аналізованого регіону. Експресію BDNF найбільше аналізували в іпсилатеральному гіпокампі та іпсилатеральній корі, у 36
та 31 дослідження відповідно. У 7 дослідженнях іпсилатеральний і контралатеральний гіпокампи були об’єднані для біохімічного дослідження та позначені як «білатеральний HC».

Рисунок 2. У розглянутому матеріалі аналізуються анатомічні ділянки.
3.3. Оцінка експресії BDNF
Була оцінена експресія як мРНК, так і білка BDNF. Найпоширенішим методом аналізу мРНК була гібридизація in situ та кількісна полімеразна ланцюгова реакція в реальному часі (КПЦР). Для кількісного визначення білка BDNF зазвичай використовували Вестерн-блот і твердофазний імуноферментний аналіз (ELISA) (Таблиця A2). У більшості розглянутого матеріалу експресія білка BDNF не була чітко визначена як зрілий, про- чи пре-BDNF. Якщо не вказано інше, ми припустили, що дослідження стосується загальної експресії білка BDNF. Крім того, якщо не вказано інше, дослідження досліджували тканини щурів або мишей.
3.3.1. Гіпокамп
Експресію мРНК BDNF в іпсилатеральному гіпокампі досліджували в 16 різних моментів часу, а експресію білка BDNF в іпсилатеральному гіпокампі досліджували в 23-точки часу (2 год- 56 д) (Малюнок 3a). У трьох дослідженнях повідомлено про збільшення експресії мРНК BNDF у перші 1-6 годин після травми [44, 46, 47], тоді як одне повідомило про зниження експресії мРНК через 20 годин після травми як у групах ЧМТ, так і в фіктивних групах [45]. У всі інші наступні моменти часу експресія мРНК BDNF в іпсилатеральному гіпокампі, як повідомлялося, була знижена або не змінювалася порівняно з фіктивною (рис. 3a) [9,47–52]. Цікаво, що експресія білка BDNF не демонструвала суттєвого підвищення експресії в перший день після травми та демонструвала зниження або відсутність змін у наступні тижні (рис. 3b). Одне дослідження повідомило про незначне порушення експресії протягом кількох годин після травми, але виявило підвищення експресії білка через 26 годин після травми [46]. Експресія білка BDNF в іпсилатеральному гіпокампі неодноразово повідомлялася як несуттєвий вплив травми через 5 годин після травми, а також через 1, 7, 11, 15, 21, 26 і 37 DPI. Проте кілька досліджень повідомляли про зниження експресії білка на 4, 7, 8, 10, 13, 14 і 28 DPI [53–69]. Дані експресії за кожну дату зазвичай були з одного дослідження на дату, а також майже виключно з травми CCI або FPI. З наявних даних не було чіткої різниці між групами травм.
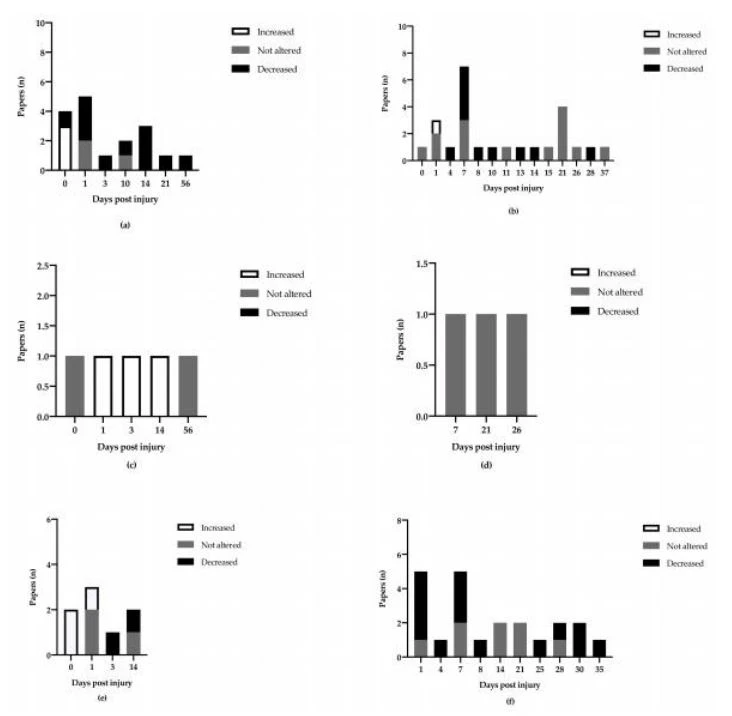
Малюнок 3. Огляд кількості моментів часу, в якихотримані з мозку нейротрофічнийЕкспресію фактора (BDNF) досліджували в розглянутому матеріалі, а також перевіряли, чи ЧМТ суттєво збільшив, зменшив або не суттєво змінив експресію BDNF порівняно з удавано травмованими тваринами. (а) Експресія мРНК BDNF в іпсилатеральному гіпокампі. (b) Експресія білка BDNF в іпсилатеральному гіпокампі. (c) Експресія мРНК BDNF в контралатеральному гіпокампі. (d) Експресія білка BDNF в контралатеральному гіпокампі. (e) Експресія мРНК BDNF в іпсилатеральній корі (f) Експресія білка BDNF в іпсилатеральній корі.
Гіпокамп, протилежний пошкодженню, аналізували в шість моментів часу на експресію мРНК BDNF і в три моменти на експресію білка BDNF, у діапазоні від 1 години до 56 днів. Ростамі та ін. повідомляють, що експресія мРНК BDNF була збільшена на 1, 3 та 14 день після травми в контралатеральному гіпокампі, але не на хронічній фазі, виміряній через 56 днів після травми [9]. У перший день після травми Yang et al. повідомили про підвищену експресію мРНК BDNF через 1, 3 та 5 годин після травми. Два дослідження показали, що на експресію білка BDNF незначно впливає травма в моменти часу 7, 21 [58] і 26 DPI [68].
3.3.2. Кора
Іпсилатеральна кора демонструє подібну картину експресії, як іпсилатеральний гіпокамп. Протягом першого дня після травми експресія мРНК BDNF була виключно підвищеною [47,70]. Коборі та ін. повідомили про підвищену експресію мРНК BDNF за допомогою RT-PCR через 2, 6 і 24 години після травми, але без істотних змін на 3 і 14 дні [71]. Як видно на рисунку 3e–f, початкове збільшення іпсилатеральної мРНК BDNF не супроводжувалося вирішальним збільшенням експресії білка BDNF. Навпаки, чотири дослідження показали, що експресія білка BDNF була знижена в перший день, а також зменшилася або незначно змінилася внаслідок травми в моменти часу 4, 7, 8, 25, 28, 30 і 35 DPI [57,69,72– 87]. Винятком були Cekic et al. які виявили, що CCI індукує збільшення зрілого білка BDNF через 24 год і 7 днів [88], а також Nagatomo-Combs et al. які проаналізували кількість клітин, що експресують BDNF-протеїн, у макак-резусів у більш тривалий час після травми та виявили збільшення кількості клітин, що експресують BDNF, через 1, 6 та 12 місяців після травми [89].
Знову ж таки, протилежна сторона досліджується не так добре. Corne та ін. досліджували кортикальну експресію мРНК у контралатеральній тім’яній частці через 21 день після травми та повідомили про зменшення всіх екзонів BDNF у групі ЧМТ порівняно з плацебо [90], тоді як Yang et al. не виявили значних змін у мРНК BDNF, зокрема, у контралатеральному неокортексі через 1, 3 та 5 годин після латерального пошкодження кори головного мозку порівняно з тваринами, які отримали удавані травми [47].
Підводячи підсумок, декілька досліджень виявили, що експресія мРНК BDNF збільшується в іпсилатеральному гіпокампі та корі головного мозку в перші 1–2 дні після травми, а мРНК BDNF збільшується в контралатеральному гіпокампі через 1–14 днів після травми. Це збільшення мРНК BDNF не супроводжується чітким збільшенням білка BDNF ні в корі головного мозку, ні в гіпокампі, однак даних залишається недостатньо, щоб зробити остаточні висновки.

стебла цистанчі
3.4. Поведінкові тести
Кілька досліджень, що вивчали кореляцію між експресією BDNF і ЧМТ, проводили поведінкові тести для оцінки функціональних результатів, як показано на малюнку 4. У розглянутому матеріалі найбільш поширеними методами функціональної оцінки булиНеврологічнийОцінка тяжкості (NSS), яка включає сукупність моторних, сенсорних, рефлексів і тестів на рівновагу, а також водний лабіринт Морріса (MWM), що оцінює просторову пам’ять. Розпізнавання нових об’єктів, перевірка розпізнавання непросторових об’єктів, ротарод, оцінка рівноваги та координації, тест у відкритому полі, оцінка рухової поведінки та занепокоєння, Elevated Plus Maze, оцінка рівня занепокоєння та, нарешті, тест Beam walk, який перевіряє рівновагу, були використані в більше 5 із розглянутих досліджень. Група під назвою «Інші» включає тести, які використовувалися лише в одному дослідженні, такі як тест на споживання сахарози, тест на коливання та оцінка тоніко-клонічних нападів. Детальніший опис поведінкових тестів наведено в наступному розділі, а також у таблиці A1.

Рисунок 4. У розглянутому матеріалі проаналізовано поведінкові тести.
3.5. Лікування ЧМТ
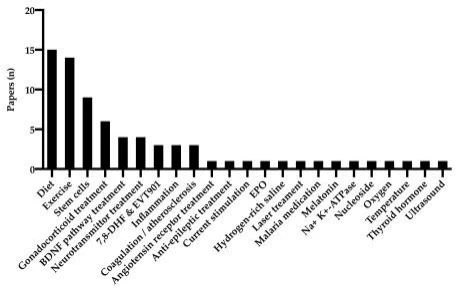
Загалом 73 дослідження використовували різні втручання для вивчення їх впливу на BDNF-
Експресія та функціональний результат після ЧМТ, як показано на малюнку 5. Найчастіше досліджували вплив фізичних вправ та дієти, потім йшло лікування стовбуровими клітинами та гонадокортикоїдами. Ознайомитися з усіма методами лікування, доступними в травматичнихмозоктравми виходять за рамки цього огляду, і ми зосередилися на огляді фізичних вправ, дієти та лікування стовбуровими клітинами, а також втручань, що впливають на внутрішньоклітинні шляхи після активації BDNF-рецептора.
3.5.1. вправи
ЛФК як лікувальний метод при травмахмозокушкодження було досліджено в 14 дослідженнях. Те, що саме представляло собою вправу, відрізнялося між дослідженнями, але найчастіше використовуваним методом було бігове колесо. Деякі дослідження відрізнялися між довільними та мимовільними вправами, а в деяких статтях не було належним чином визначено, який тип вправ виконувався. З цих 14, 11 досліджень виявили, що або до, або після травматичних фізичних вправ збільшували експресію церебрального білка BDNF в іпсилатеральному та контралатеральному гіпокампі, а також в іпсилатеральній корі, порівняно з тваринами, які не тренувалися [58,59,62– 64,66–69,71,78,91–93]. Два дослідження показали, що експресія BDNF не змінилася суттєво у щурів, які піддавалися фізичним навантаженням після ударної травми рідиною через 7 або 11 днів після травми відповідно [63,78]. Нарешті, Wu et al. виявили, що фізичні вправи в поєднанні з дієтою, збагаченою докозагексаєновою кислотою, фосфоліпідом плазматичної мембрани, підвищують експресію білка BDNF порівняно з тваринами без збагаченої дієти та неактивними тваринами. Більшість досліджень виявили, що фізичні вправи також покращують функціональні результати після травми. В одному дослідженні використовували систему бігового колеса з інфрачервоним датчиком і тренували мишей протягом трьох днів до операції та трьох тижнів після. Вони виявили, що ця вправа покращує короткочасну пам’ять, що посилюється страхом, і просторову пам’ять, перевірену за допомогою тесту пасивного уникнення та тесту Y-Maze [69]. У цьому ж дослідженні також вивчався ген HSP20, ген, що експресує білок теплового шоку 20, який є шапероном, про який раніше було відомо, що він експресується після тканинного стресу та є захисним, наприклад, при хворобі Альцгеймера. Вони виявили, що глушіння гена HSP20 скасовує посилення, спричинене фізичними вправами. Три дослідження, які вивчали фізичні вправи, виявили кореляцію між покращенням експресії білка BDNF (і одне дослідження показало, що фізичні вправи збільшують експресію мРНК BDNF) і покращенням когнітивних функцій у тесті Morris Water Maze [64,67,68,71]. Griesbach та ін. показали, що щури, які тренувалися, показали кращі результати в тесті водяного лабіринту Морріса після травми порівняно з щурами, які не тренувалися, і що травмовані щури, які отримали інактивуюче антитіло TrkB-IgG, не отримали користі від фізичних вправ, що додатково свідчить про те, що фізичні вправи здійснюють свій покращувальний ефект через шлях BDNF [67].
Да Сілва Фіорін та ін. і Чжао та ін. були єдиними, хто вивчав вплив претравматичних вправ. да Сільва Фіорін та ін. виявили, що, хоча сам по собі FPI не мав істотного впливу на експресію білка BDNF, попередні фізичні вправи викликали збільшення експресії білка BDNF в гіпокампі на 1 і 14 DPI. Чжао та ін. виявили, що вправи на біговому колесі за 4 тижні до травми збільшували експресію мРНК BDNF в іпсилатеральній корі як фіктивних, так і травмованих тварин порівняно з тваринами, які не тренувалися. Вони також виявили, що передтравматичні вправи покращують моторику в тесті ходьби на промені та когнітивні функції у водному лабіринті Морріса та тестах на розпізнавання нових об’єктів.
Griesbach та ін. використовували вправу довільного колеса та досліджували функціональний результат після латеральної рідинної перкусії та не виявили суттєвого впливу на грубі моторні порушення. Shen та ін. досліджували різні моделі інтенсивних тренувань і досліджували функціональний результат після сильного контрольованого кортикального впливу і виявили, що, хоча не було істотної різниці між травмованими групами вНеврологічнийЗа оцінками дефіциту, тварини з низькою інтенсивністю тренувань показали кращі показники MWM порівняно з контрольними тваринами та тваринами з високою інтенсивністю. Griesbach та ін. використовували модель латеральної ударної травми рідиною з довільним вправою колеса і не виявили суттєвого впливу вправи на експресію BDNF або на результат тесту ходьби за променем [59,68,78]. Хікс та ін. виявили, що перкусія рідиною істотно знижує функцію NSS і MWM, і що посттравматичні вправи збільшують експресію білка BDNF, але не мають істотного впливу на NSS або MWM [92].
Натисніть тут, щоб перейти до частини 2