Модулюючий вплив китайських рослинних лікарських засобів на енергетичний метаболізм при ішемічній хворобі серця Частина Ⅰ
Mar 04, 2022
Для отримання додаткової інформації:ali.ma@wecistanche.com
Фанхе Лі, Цзіньмао Лі, Сайсай Лі, Шувен Го та Пін Лі
1 3-я афілійована лікарня Пекінського університету китайської медицини, Пекін, Китай,
2 Лікарня Фаншань, Пекінський університет китайської медицини, Пекін, Китай
Ішемічна хвороба серця (ІХС), основна глобальна проблема охорони здоров’я, пов’язана з високою захворюваністю та смертністю. Незважаючи на те, що найкращі сучасні підходи довели свою ефективність у зниженні захворюваності та смертності, поганий прогноз для пацієнтів з ІХС залишається основною клінічною проблемою. Серцевий енергетичний метаболізм все частіше визнається як той, хто відіграє роль у патогенезі ІХС, викликаючи зміни метаболічного субстрату, мітохондріальну дисфункцію, порушення функції мітохондріального ланцюга транспорту електронів і депривацію серцевої енергії. Фактори, що беруть участь в енергетичному метаболізмі серця, є потенційними терапевтичними мішенями для лікування ІХС. Китайські рослинні ліки (CHM) мають довгу історію використання для профілактики та лікування серцево-судинних захворювань з багатокомпонентним, багатоцільовим та багатосигнальним. Все більше доказів свідчить про те, що китайські трав’яні ліки можуть покращити ішемію міокарда шляхом модулювання серцевого енергетичного метаболізму. Тут ми описуємо можливі цілі та шляхи серцевого енергетичного метаболізму для CHM та оцінюємо модуляторні ефекти CHM на енергетичний метаболізм при ІХС. Зокрема, цей огляд зосереджений на узагальненні метаболічних ефектів і основних механізмів китайських рослинних ліків (включаючи трави, основні біологічно активні компоненти та формули) при ІХС. Крім того, ми також обговорюємо поточні обмеження та основні виклики для дослідження використання CHM у лікуванні серцево-судинних захворювань.

Cistanche deserticola Ma, також відомий якHerba Cistanche(HC), є "Ян-підбадьорливий"Китайська тонізуюча трава. Екстракти Herba Cistancheзахищений від ішемії міокарда/реперфузійного ушкодження шляхом посилення мітохондріального утворення АТФ. Глутатіон (GSH) є першою лінією захисту від окисного пошкодження. Екстракт Herba Cistanche може посилити мітохондріальне дихання шляхом підвищення мітохондріальних рівнів GSH, зниження мітохондріального окисленого глутатіону (GSSG), покращення ММП та зниження мітохондріального рівня Ca2 плюс (Siu and Ko, 2010). Інше дослідження показало кардіопротекторний ефектHerba Cistanchesфракції (HCF1) in vitro та in vivo. In vitro HCF1 при 30 нг/мл значно підвищив мітохондріальну здатність до генерації АТФ (ATP-GC), мітохондріальну продукцію ROS і мітохондріальне дихання. In vivo HCF1 значно підвищував статус мітохондріального GSH і підвищував вміст ATP-GC у I/R дорослих самок щурів. Дивно, але вони виявили, що низькі дози HCF1 значно знижували рівень АТФ у тканинах у щурів, які не були I/R, тоді як виснаження рівня АТФ у тканинах HCF-1 було зменшено у щурів I/R. Це явище у щурів без I/R може бути пов’язане з індукованим HCF стійким мітохондріальним роз’єднанням, тоді як у щурів I/R це може бути пов’язано зі збільшенням ATP-GC за допомогою HCF-1 (Wong and Ko, 2013). ). b-ситостерин (BS), як гідрофобна сполука HCF1, знижував рівень ЛДГ і збільшував клітинний окислювально-відновний цикл глутатіону в міокардіальних I/R самок щурів. Але BS не мав значного впливу на мітохондріальний АТФ-ГК у міокарді самців або самок щурів (Wong et al., 2014). Тому ефекти мітохондріального АТФ-ГХ вЕкстракт Cistanche deserticola Maможе залежати від інших сполук, які потребують подальшого вивчення.
Клацніть, щоб переглянути продукти екстракту Cistanche tubulosa
Ключові слова: енергетичний обмін, ішемічна хвороба серця, китайські фітопрепарати, серцевий метаболізм, мітохондріальна функція
ВСТУП
Ішемічна хвороба серця (ІХС) є найпоширенішою причиною смерті серед серцево-судинних захворювань, що накладає значне соціально-економічне навантаження. У дослідженні Global Burden of Disease Study 2017 (GBD 2017) повідомляється, що загальна кількість смертей від ІХС зросла з 7,30 до 8,93 мільйонів між 2007 та 2017 роками на глобальному рівні (GBD 2017 Causes of Death Collaborators, 2018). ІХС складається в основному з ішемічної хвороби серця (включаючи стенокардію, нефатальний інфаркт міокарда та коронарну смерть), безсимптомної ішемії міокарда, раптової серцевої смерті та ішемічної серцевої недостатності (Wong, 2014; Guo et al., 2018). Сучасні терапевтичні підходи в основному залежать від медичних втручань, таких як статини, антитромбоцитарні препарати, блокатори бета-рецепторів (b-блокатори) та інгібітори ангіотензинперетворюючого ферменту (АПФ), на додаток до хірургічних процедур, таких як черезшкірне коронарне втручання (ЧКВ). та операція аортокоронарного шунтування (АКШ). Хоча ці медичні та хірургічні методи лікування довели ефективність у зниженні захворюваності та смертності після ІХС, мільйони пацієнтів все ще мають клінічні симптоми, включаючи стиснення в грудях, серцебиття, задишку та втому. Тому надзвичайно важливо розробити нові стратегії лікування, що включають різні механізми ішемії міокарда та навіть реперфузії.

Серцевий енергетичний обмін відіграє важливу роль у прогресуванні серцево-судинних захворювань. Ван Білсен та ін. (2004) запропонували концепцію метаболічного ремоделювання міокарда. З розвитком сучасної науки та передових технологій зміни в енергетиці міокарда, такі як зміни у використанні енергетичного субстрату, порушення мітохондріального окисного фосфорилювання та зниження здатності до перенесення та використання аденозинтрифосфату (АТФ), все частіше визнаються як такі, що відіграють вирішальну роль у механізми ІХС (Fukushima et al., 2015; Tuomainen and Tavi, 2017). Позбавлення серцевої енергії призводить до серцевої скорочувальної дисфункції, ремоделювання лівого шлуночка і навіть до серцевої недостатності (СН). Отже, все більше доказів підтверджує, що модуляція серцевого енергетичного метаболізму може бути ефективним засобом покращення серцевої функції та уповільнення прогресування серцевої недостатності (Neubauer, 2007; Lang та ін., 2015; Qi та Young, 2015; Yang та ін., 2016). ; Туомайнен і Таві, 2017). Китайські рослинні ліки (CHM) нещодавно привернули велику увагу як потенційна терапевтична стратегія для профілактики та лікування ішемії міокарда шляхом модуляції енергетичного метаболізму. Це нова стратегія захисту ішемічного міокарда від ІХС. Цей огляд зосереджений на потенційній ефективності трав, основних біологічно активних компонентів (MBC) і китайських трав’яних формул (CHF) у модулюванні серцевого енергетичного метаболізму при ІХС, а також пов’язаних механізмів.
ЦІЛІ ТА СИГНАЛІЗАЦІЯ СЕРЦЕВОГО ЕНЕРГЕТИЧНОГО МЕТАБОЛІЗМУ ДЛЯ КИТАЙСЬКИХ ЛІКАРСЬКИХ ТРАВ
Теорія "ци-кров" ТКМ пов'язана з метаболізмом серцевої енергії
Серце здорового дорослого має постійні високі потреби в енергії та потребує безперервного скорочення, щоб забезпечити організм кров’ю та киснем. Будучи електростанціями кардіоміоцитів, мітохондрії постійно постачають енергію, необхідну для скорочення серцевого м’яза. За нормальних умов майже все утворення АТФ у здоровому дорослому серці відбувається за рахунок мітохондріального окисного фосфорилювання, а решта в основному за рахунок гліколізу. При ішемічному серці порушення окисного фосфорилювання мітохондрій забезпечує недостатнє надходження АТФ до кардіоміоцитів. Наявні дані свідчать про те, що серцевий енергетичний метаболізм добре корелює з серцевою функцією. Знижена здатність до передачі енергії серця призводить до дисфункції серцевого насоса, порушення кровотоку, скоротливої функції серця і навіть серцевої недостатності (Huss and Kelly, 2005). Пошук стратегій лікування для модуляції серцевого енергетичного метаболізму є однією з головних проблем серцево-судинних захворювань.
Традиційна китайська медицина (ТКМ) характеризується «цілісною концепцією», згідно з якою організм розглядається як єдине ціле. У ТКМ Ци і кров є основними речовинами організмів, які забезпечують життєдіяльність людини. Ці має стимулюючу, зігріваючу, консолідаційну та утримуючу функцію, яка забезпечує енергією для сприяння кровообігу та підтримує безперервний рух крові всередині судин. Як перша класична китайська медицина та джерело теорії ТКМ, Внутрішня класика Сувеня Жовтого Імператора описує, що серце керує кров’ю та судинами. Це означає, що Heart-Qi сприяє і підтримує утворення і циркуляцію крові в судинах для живлення органів і тканин, підтримки балансу рідини в організмі і підтримки нормальної фізіологічної діяльності. Велика кількість Серцевої Ци, достатня кількість крові і прохідність судин - три основні компоненти, які контролюють нормальну циркуляцію крові. У серці Heart-Qi керує синтезом АТФ через АТФ-синтазу в серцевих мітохондріях, щоб забезпечити життєву енергію, необхідну для скорочення та розслаблення серцевого м’яза. Симптоми ішемії міокарда у клінічних пацієнтів в основному включають стиснення в грудях, серцебиття, задишку та слабкість. Ці симптоми ішемії міокарда відповідають симптомам синдрому серцевої недостатності Qi, що в подальшому викликає порушення кровообігу та мікроциркуляції серця, що призводить до синдрому застою крові. Дефіцит серцевої ци також може спричинити недостатність серцевого ян, що супроводжується низкою таких симптомів, як холодний піт, непереносимість холоду та холодні кінцівки. Крім того, дефіцит Ци серця може спричинити гіперпроникність мікросудин, що призводить до надмірної рідини, мокротиння, набряку та крововиливу. Ґрунтуючись на теорії ТКМ «Кров Ци», китайські трав’яні ліки, які можуть тонізувати або регулювати Ци та активувати кров, є перспективними як важливий терапевтичний підхід до модуляції енергетичного метаболізму серця в кардіології.

Можливі цілі метаболізму серцевої енергії для китайських рослинних ліків
Китайські рослинні ліки, як природні ботанічні трави, мають довгу історію клінічного використання для лікування серцево-судинних захворювань і мають властивості багатьох потенційних фармакологічних мішеней. Вони мають великий і унікальний потенціал у управлінні серцевим енергетичним метаболізмом, особливо в аспектах функції мітохондрій, ліпідного обміну та метаболізму глюкози. Деякі з цих можливих цілей описані нижче, класифіковані за процесом серцевого енергетичного метаболізму. Метаболічний процес, який бере участь у серцевому енергетичному метаболізмі, складається з трьох основних компонентів (рис. 1), а саме: перевага енергетичного субстрату, мітохондріальне окисне фосфорилювання та перенесення й утилізація АТФ (Neubauer, 2007).
Першою складовою є використання енергетичного субстрату. Кардіоміоцити можуть метаболізувати всі класи енергетичних субстратів, включаючи жирні кислоти, глюкозу, глікоген, лактат, кетонові тіла та певні амінокислоти (Heggermont et al., 2016). Вільні жирні кислоти (ВЖК) і глюкоза спочатку потрапляють в міокард з плазми, а потім перетворюються відповідно в жирний ацил-коензим А (ацил-КоА) і гліколітичний кінцевий продукт - піруват в цитоплазмі кардіоміоцитів. Довголанцюговий жирний ацил-КоА транспортується в мітохондрії за допомогою карнітинпальмітоілтрансферази 1 і 2 (CPT1 і CPT2), тоді як піруват поглинається в мітохондрії мітохондріальним переносником пірувату (MPC) (Arumugam et al., 2016; Noordali et al. , 2018).

Другим компонентом є мітохондріальне окисне фосфорилювання, яке забезпечує понад 95 відсотків АТФ, необхідного для зрілого серця. Зазвичай бета-окислення жирних кислот (FAO), основне джерело мітохондріального окисного фосфорилювання, забезпечує понад дві третини енергетичних потреб міокарда дорослої людини, а решта забезпечується окисленням субстратів, таких як вуглеводи, лактат, кетони. тіла та кілька амінокислот (Heggermont et al., 2016). Ці потоки мітохондріального субстрату через певні метаболічні етапи (особливо бета-окислення жирних кислот і окислення пірувату) дають ацетилкоензим А (ацетил-КоА), який згодом входить до циклу трикарбонових кислот (TCA) (Kolwicz et al., 2013). Нікотинамідаденіндинуклеотид (NADH) і флавінаденіндинуклеотид (FADH2) утворюються відповідно в циклі TCA і бета-окисленні (Schwarz et al., 2014). NADH і FADH2 подають високоенергетичні електрони в мітохондріальний електротранспортний ланцюг (ETC), створюючи електрохімічний градієнт через комплекси ETC (комплекс IV) через внутрішню мітохондріальну мембрану (IMM), що згодом приводить в дію синтез АТФ (Huss and Kelly, 2005). Серед них АТФ-синтаза (комплекс V), як кінцевий етап мітохондріального окисного фосфорилювання, генерує АТФ шляхом фосфорилювання аденозиндифосфату (АДФ). Перенесення електронів між комплексами опосередковується убіхіноном (CoQ) і цитохромом c (Cyt c). Окрім утворення NADH і FADH2, цикл TCA також утворює надлишок цитрату в цитозолі, де він перетворюється на ацетил-КоА (Murphy та ін., 2016; Noordali та ін., 2018). Цитозольний ацетил-КоА далі перетворюється на малоніл-КоА за допомогою ацетил-КоА-карбоксилази (ACC), тоді як малоніл-КоА, потужний інгібітор CPT-1, може перетворюватися назад в ацетил-КоА за допомогою малоніл-КоА-декарбоксилази (MCD), таким чином регулюючи надходження FFA знову потрапляє в мітохондрії (Fukushima et al., 2015; Noordali et al., 2018). Третій компонент включає серцеву передачу й утилізацію АТФ через систему креатинкінази (CK) (Neubauer, 2007; Fukushima et al., 2015). Високоенергетичні фосфати переносяться з АТФ, що утворюється шляхом окисного фосфорилювання в мітохондріях, до креатину (Cr), таким чином утворюючи фосфокреатин (ПЛР) і АДФ під дією мітохондріальної креатинкінази. Фосфокреатин швидко дифундує з мітохондрій у міофібрили, а потім перетворює АТФ і Cr під дією міофібрилярної креатинкінази (Neubauer, 2007). Згодом АТФ використовується міозиновою АТФ-азою для створення сили серцевого скорочення, тоді як вільний Cr дифундує назад до мітохондрій.
Можлива транскрипційна передача сигналів серцевого енергетичного метаболізму для китайських рослинних ліків
Механізми серцевого енергетичного метаболізму є складними і в основному контролюються метаболічними білками (ферментами та транскрипційними компонентами), які регулюють експресію великої кількості генів, залучених до енергетичного метаболізму міокарда через численні метаболічні шляхи (Stanley et al., 2005). Зокрема, мітохондріальна структура та функція регулюється численними генами, включаючи 37 генів, закодованих у мітохондріальній ДНК, і значну кількість генів, закодованих у ядерній ДНК (Ham and Raju, 2016). Стає все більш очевидним, що численні ядерно-мітохондріальні перехресні перешкоди та сигнальні шляхи відіграють важливу роль у регулюванні серцевого енергетичного метаболізму в умовах ішемії (Qi and Young, 2015; Murphy et al., 2016).
Китайські рослинні лікарські засоби також можуть модулювати численні потенційні шляхи через їх властивості багатокомпонентності. Деякі з цих можливих шляхів описані нижче (рис. 2). Аденозинмонофосфат-активована протеїнкіназа (AMPK) є критично важливим внутрішньоклітинним енергетичним датчиком, і її активація бере участь у багатьох сигнальних шляхах, включаючи модуляцію метаболізму глюкози та жирних кислот, мітохондріальну функцію та аутофагію (Murphy et al., 2016; Nishida and Otsu) , 2016). AMPK складається з трьох білкових субодиниць: каталітичної субодиниці a, що містить сайт Thr172, який повинен бути фосфорильований для активації AMPK, і двох регуляторних субодиниць (g і b) (Zaha and Young, 2012). Активність АМФК частково активується збільшенням співвідношення АМФ/АТФ у низькоенергетичних станах. Під час ішемії міокарда активація AMPK в міокарді активується як адаптивна відповідь на стрес кардіоміоцитів, що призводить до ряду змін у метаболічних шляхах. Активація AMPK збільшує поглинання глюкози клітинами, опосередковуючи транспорт переносника глюкози 4 (GLUT4) від цитозолю до мембрани сарколемми при ішемії на ранній стадії адаптації (Russell et al., 2004; Qi and Young, 2015), і сприяє гліколіз шляхом фосфорилювання фосфофруктокінази 2 (PFK2) (Marsin et al., 2000). AMPK може пригнічувати активність глікогенсинтази (GS), яка опосередковано сприяє утилізації глікогену (Qi and Young, 2015). Крім того, AMPK також відіграє вирішальну роль у модулюванні метаболізму ліпідів. Активований AMPK полегшує захоплення міокардом жирних кислот шляхом сприяння транслокації транспортера жирних кислот CD36 (Luiken et al., 2003). Тим часом активація AMPK додатково призводить до зниження рівнів малоніл-КоА через інактивацію ACC, що ефективно сприяє окисленню жирних кислот шляхом послаблення пригнічення CPT-1 (Dyck and Lopaschuk, 2006) (рис. 1). При цьому процес мітохондріального біогенезу зберігається в динамічній рівновазі, яка зазнає постійного злиття і поділу. Відомо, що протеїн 1 (Drp1) і Fission 1 (Fis1), пов’язаний з динаміном, сприяють поділу мітохондрій. Мітофузин 1 і 2 (MFN1 і MFN2) в основному опосередковують злиття зовнішньої мембрани, тоді як Opa1 в основному відповідає за злиття внутрішньої мембрани. Дисбаланс мітохондріальної динаміки призводить до дефектів мітохондріальної морфології та мітохондріальної дисфункції під час ішемічних контекстів. Індукована гіпоксією активація AMPK може сприяти поділу мітохондрій через фосфорилювання фактора мітохондріального поділу (MFF), який вважається рецептором зовнішньої мембрани мітохондрій для Drp1, важливого ферменту для забезпечення рушійної сили поділу мітохондрій (Garcia and Shaw, 2017). ). Крім того, аутофагія регулюється активацією AMPK, яка відновлює порушену функцію міокарда через механічну мішень рапаміцину (mTOR) (Wu et al., 2020a).
Коактиватор гамма-рецептора, активованого проліфератором пероксисом (PPARg) (PGC-1a) є добре охарактеризованим медіатором мітохондріального біогенезу та дихання, і його активність також може модулюватися фосфорилюванням AMPK (Gundewar et al., 2009) ( малюнок 2). На додаток до фосфорилювання AMPK, активність PGC- 1суворо контролюється деацетилюванням NAD плюс залежної деацетилази сіртуїну-1 (SIRT1), що сприяє мітохондріальному біогенезу (Fernandez-Marcos і Auwerx, 2011; Zaha and Young). , 2012; Хем і Раджу, 2016). Відомо, що як кофактор PGC-1a контролює експресію багатьох ядерних рецепторів і факторів транскрипції, таким чином регулюючи весь метаболічний фенотип кардіоміоцитів. PGC-1a модулює мітохондріальний біогенез і окисне фосфорилювання шляхом прямої активації ядерних респіраторних факторів (NRF1 і NRF2) і фактора транскрипції рецептора альфа (ERRa). NRF1 активує подальший синтез мітохондріального фактора транскрипції A (MTTF), який регулює реплікацію, транскрипцію та підтримку мтДНК (Kang and Hamasaki, 2005; Rowe et al., 2010). Як основний транскрипційний партнер PGC-1a, ERRa може індукувати збільшення експресії NRF2, модулюючи цикл і диференціювання кардіоміоцитів, а також мітохондріальний біогенез (Ham and Raju, 2016). PGC-1 також коактивує PPARa, який бере участь у метаболізмі жирних кислот у кардіоміоцитах (Finck, 2007; Lehman et al., 2000). Крім того, активація PGC-1a посилює мітохондріальне дихання шляхом збільшення експресії цитохрому с, субодиниць цитохром-с-оксидази II і IV (ЦОГ-II і IV) і АТФ-синтази (Choi та ін., 2008; Еспіноза та ін. ., 2010).
МОДУЛЯЦІЙНИЙ ЕФЕКТ КИТАЙСЬКИХ ФІТОПРЕПАРАТІВ НА ЕНЕРГЕТИЧНИЙ МЕТАБОЛІЗМ ПРИ ІХС
Серцевий енергетичний метаболізм є дуже гнучким щодо енергетичних субстратів, з динамічним балансом, який змінюється старінням, а також фізіологічними та патологічними контекстами (Huss and Kelly, 2005; Arumugam et al., 2016). Підвищене бета-окислення жирних кислот зі старінням супроводжується прогресуючим зниженням гліколітичного метаболізму. Серце плода використовує окислення глюкози як основне джерело енергії, тоді як міокард дорослої людини значно більше залежить від метаболізму жирних кислот. Цікаво, що під час ішемічних станів метаболічний профіль серця демонструє значну подібність із таким у плода. Вважається, що це явище повертається до «фетальної фази» (Tuomainen and Tavi, 2017). На додаток до змін у використанні серцевого субстрату, зміни ультраструктури та функції мітохондрій відіграють вирішальну роль у механізмах ІХС. Серцеві мітохондрії, як електростанції кардіоміоцитів, включають складну серію процесів окисного фосфорилювання. Вони є не лише основним джерелом синтезу АТФ і виробництва активних форм кисню (АФК) у серцевих міоцитах, але й відіграють вирішальну роль у процесі апоптозу. Гіпоксія/ішемія міокарда пригнічує низку процесів мітохондріального окисного фосфорилювання та перенаправляє піруват на лактат, що призводить до закислення клітин. Ішемічний кардіоміоцит демонструє помітну знижену здатність синтезувати АТФ, значно збільшене виробництво мітохондріальних АФК, приплив кальцію та навіть перевантаження Ca2 плюс, що призводить до зміни проникності мітохондріальної мембрани, втрати потенціалу мітохондріальної мембрани (ММП) і набряку мітохондрій із вивільненням цитохрому c. Ці явища також спричиняють активацію апоптосоми та опосередкований каспазою апоптоз (Ham and Raju, 2016). При реперфузії виникає серія мітохондріальних порушень, включаючи швидке відновлення окисного фосфорилювання, пригнічення активності дихального ланцюга, накопичення мітохондріальних АФК і Ca2 плюс перевантаження, відкриття пір проникності мітохондріальної мембрани (mPTP), мітохондріально-залежний апоптоз і навіть загибель клітин (Ham and Raju, 2016; Wu et al., 2020a).
Сучасні методи лікування, такі як інгібітори АПФ і бета-блокатори, мають непрямий вплив на серцевий метаболізм на додаток до їх класичних ефектів, але вони не впливають безпосередньо на серцевий енергетичний метаболізм (Neubauer, 2007). Зростає кількість доказів того, що модуляція серцевого метаболізму може бути перспективним терапевтичним підходом до пацієнтів з ІХС (Noordali та ін., 2018; Doehner та ін., 2014; Heggermont та ін., 2016). В даний час у клінічних випробуваннях використовуються такі відомі метаболічні модулятори, як триметазидин, L-карнітин і коензим Q10. Метаболічні механізми цих модуляторів в основному включають інгібування окислення жирних кислот, стимуляцію окислення глюкози та захист мітохондріальної функції (Suner and Cetin, 2016; Di Napoli et al., 2007; Xue et al., 2007; Fotino et al. , 2013). У ТКМ китайські лікарські трави широко використовуються при лікуванні серцево-судинних захворювань у клініках. CHM мають свої переваги, які зумовлені фармакологічними властивостями багатокомпонентності, багатоцільової та багатошляхової дії. Зростаюча кількість досліджень показала, що CHM з відновленням Ци або Ян і активацією крові або розв’язанням стазу крові можуть регулювати серцевий енергетичний метаболізм при ІХС (Wong and Ko, 2013; Chen et al., 2015; Zhang et al., 2013; Li). та ін., 2018a).
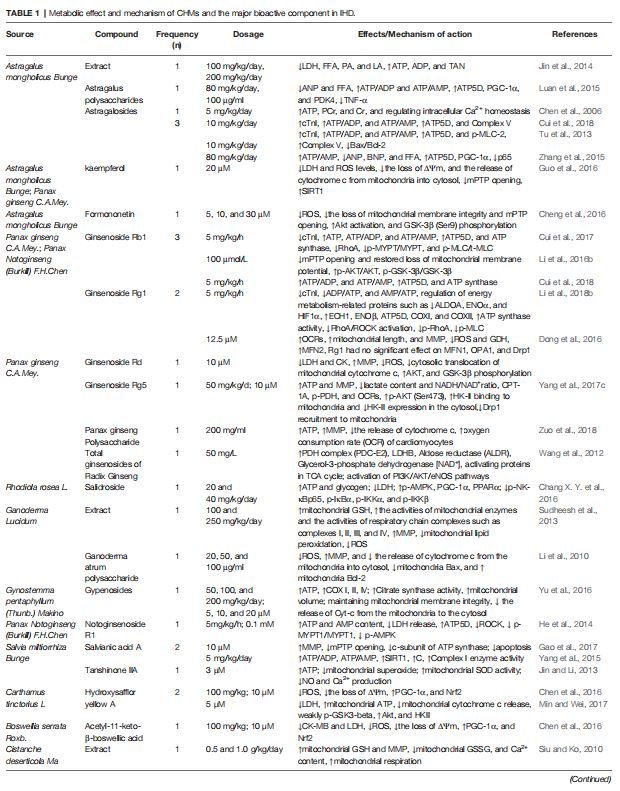
У цій статті ми в основному підсумовуємо метаболічні ефекти та механізми, що лежать в основі китайських трав’яних ліків, основного біологічно активного компонента CHM, і китайських трав’яних формул при ІХС відповідно (таблиці 1 і 2). Зокрема, модель гострого інфаркту міокарда зазвичай індукується перев'язкою лівої передньої низхідної (LAD) коронарної артерії, яка є найбільш широко використовуваною хірургічною тваринною моделлю. Модель інфаркту міокарда, індукованого ізопротеренолом (Iso), є добре розробленою моделлю нехірургічного ІМ (Kumar et al., 2016). Таким чином, основні критерії включення включали модель ІМ, що включає Iso, модель ІМ, спричинену перев’язкою коронарної артерії LAD, і модель ішемії та реперфузії (I/R) міокардіальної травми. Основні критерії виключення включали фізичне тренування, метаболомічний аналіз, модель СН, спричинену ангіотензином II, модель СН, спричинену перев’язкою черевної аорти, ішемію міокарда, спричинену хлоридом кобальту, та ушкодження міокарда, спричинене доксорубіцином.

Метаболічні ефекти та механізми трав і основних біоактивних компонентів
Бадьорить і відновлює Ци
Astragalus mongholicus Bunge (Astragali Radix)
Astragalus mongholicus Bunge (Astragalus membranaceus, AM), також відомий як Huang-qi у Китаї, вважається одним із основних ліків, що відновлюють Ци. Класифікований як трава вищого сорту в "Шень Нонг Бен Цао Цзин", астрагал монголікус Бунге широко використовується для лікування серцево-судинних захворювань (Ma et al., 2013). Останні дослідження зосереджені на його кардіопротекторній дії, особливо пов’язаній з покращенням енергетичного обміну. Екстракт кореня астрагалу (ARE) надає кардіопротекторний ефект проти інфаркту міокарда, спричиненого лігуванням LAD, шляхом виправлення рівнів FFA, піровиноградної кислоти (PA) і молочної кислоти (LA) у сироватці крові та тканині міокарда, таким чином виробляючи більше енергії (Jin та ін. ., 2014). Астрагалозиди приблизно витягують із кореня астрагала. Астрагалозиди (5 мг/кг/день, внутрішньовенно) показали захисну дію, відновлюючи внутрішньоклітинний Ca2 плюс гомеостаз і регулюючи енергетичний метаболізм при ішемічному пошкодженні міокарда, спричиненому Ізо. Однак про механізм астрагалозидів ще не повідомлялося (Chen та ін., 2006). Повідомлялося, що астрагалозид IV (AS-IV), основний біологічно активний компонент астрагалозидів, покращує серцеву дисфункцію та модулює енергетичний метаболізм на моделі щурів з ІМ. Метаболічний механізм може бути опосередкований через стимулювання експресії комплексу V та дельта-субодиниці АТФ-синтази (ATP5D) (Cui та ін., 2018). Інше дослідження виявило метаболічну роль AS IV в ішемії міокарда та ішемічному/реперфузійному пошкодженні. AS-IV також посилив експресію ATP5D і комплексу V (Tu et al., 2013). Ці результати вказують на те, що AS-IV може регулювати енергетичний обмін через мітохондріальне дихання. Крім того, AS-IV може модулювати біосинтез енергії. Чжан та ін. (2015) виявили, що AS-IV покращує серцеву гемодинаміку, опосередковує біосинтез енергії та посилює експресію ATP5D і PGC-1при ізо-індукованому серцевому ураженні. У міоцитах шлуночків новонароджених щурів (NRVMs) кардіопротекторний механізм AS-IV може бути опосередкований через передачу сигналів регулюючого ядерного фактора NF-kB/PGC-1a (Zhang et al., 2015). Глікогенсинтаза кіназа-3b (GSK-3b), серин/треонін-протеїнкіназа, взаємодіє з мітохондріальними білками, такими як PI3K-Akt, PGC-1a та субодиницями mPTP, який відіграє важливу роль у зв’язку з мітохондріальним біогенезом, мітохондріальною проникністю та метаболізмом глікогену (Yang et al., 2017a). Формононетин є основною ізофлавоноїдною сполукою Radix Astragali. Формононетин посилював фосфорилювання GSK-3b і Akt у клітинах H9c2 під час киснево-глюкозної депривації (OGD) і реоксигенації, тим самим знижуючи активність GSK-3b у напрямку відкриття mPTP (Cheng et al., 2016). Кемпферол, природний флавоноїд, міститься в Astragalus mongholicus Bunge і Panax ginseng CAMey. Кемпферол продемонстрував кардіопротекторну дію через мітохондріальний шлях проти ішемії/реперфузійного пошкодження в NRVM. Кардіопротекторні механізми можуть бути опосередковані SIRT1 (Guo et al., 2015). Полісахариди астрагалу (AP) мають здатність покращувати біосинтез серцевої енергії та запобігати Iso-індукованому серцевому ішемічному пошкодженню, регулюючи фактор некрозу пухлини TNF-a/PGC-1біосинтез енергії, опосередкований сигналами, як in vivo, так і in vitro. Серед них ATP5D, PGC-1a та ізоформа 4 піруватдегідрогенази кінази (PDK4) підвищилися, що означає, що AP може бути пов’язаний з енергетичним метаболізмом (Luan et al., 2015).


Panax ginseng CAMey(RG)
Panax ginseng CAMey. (Radix ginseng), також відомий як Ren Shen, добре відомий своїм ефектом «Відновлення Ци» в TCM і внесений до списку трав вищого сорту в «Shen Nong Ben Cao Jing». За останнє десятиліття репрезентативні активні інгредієнти женьшеню Radix (включаючи гінзенозид Rb1, гінзенозид Rd, гінзенозид Rg1, гінзенозид Rg5, полісахарид Panax ginseng і загальні гінзенозиди) мають значний вплив на енергетичний обмін. Було показано, що гінзенозид Rb1 (Rb1), основний ефективний інгредієнт женьшеню Panax, модулює енергетичний метаболізм при ішемії міокарда та реперфузійному пошкодженні, гіпертрофії та навіть серцевій недостатності (Zheng et al., 2017). У щурячих моделях інфаркту міокарда Rb1 міг збільшити експресію мітохондріального ATP5D і комплексу V (Cui et al., 2018). При ішемічному/реперфузійному пошкодженні Rb1 зменшував розміри інфаркту, пригнічував відкриття mPTP, відновлював MMP і посилював експресію p-AKT і p-GSK-3b. Ці результати вказують на те, що захисні ефекти Rb1 проти I/R-індукованого пошкодження міокарда можуть бути пов’язані із захистом мітохондріальної функції (Li et al., 2016b). Подібним чином Rb1 може захищати серцеві міоцити та модулювати енергетичний метаболізм від пошкодження міокарда, спричиненого I/R, через сигнальний шлях RhoA (Cui та ін., 2017). Гінзенозид Rd (Rd) — це ще один біологічно активний екстракт Panax ginseng CAMey. Wang та ін. (2013) виявили, що Rd справляє кардіопротекторну дію шляхом стабілізації MMP і послаблення вивільнення мітохондріального цитохрому c при ішемії міокарда/реперфузійному пошкодженні. Будучи основною сполукою Radix Ginseng, гінзенозид Rg1 (Rg1) модулював енергетичний метаболізм при ішемії/реперфузійному пошкодженні шляхом підвищення вмісту АТФ і активності комплексів дихального ланцюга мітохондрій, що може бути частково пов’язано з його зв’язуванням з RhoA та, як наслідок, пригніченням RhoA. /ROCK шлях (Li та ін., 2018b). In vitro обробка Rg1 (12,5 мМ) мала кардіопротекторний ефект через регуляцію мітохондріальної динаміки та досягалася шляхом модерування глутаматдегідрогенази (GDH) і дисрегуляції MFN2. Однак Rg1 не мав істотного впливу на MFN1, OPA1 і Drp1 (Dong et al., 2016). Мітохондріальна гексокіназа-II (HK-II), як ключова молекула в гліколізі, має здатність зберігати цілісність мітохондрій і запобігати загибелі мітохондрій (Roberts and Miyamoto, 2015). Гінзенозид Rg5 (Rg5) полегшив ізоіндуковане ішемічне пошкодження міокарда шляхом інгібування окислення жирних кислот і регулювання дисбалансу мітохондріальної динаміки. Rg5 може покращити мітохондріальну дисфункцію шляхом регулювання зв’язування мітохондріального HK II і зменшення залучення Drp1 до мітохондрій через активацію Akt (Yang et al., 2017c). Полісахарид женьшеню (PGP) мав кардіопротекторну дію та захищав функцію мітохондрій при пошкодженні міокарда I/R. In vitro PGP зменшував вивільнення мітохондріального цитохрому c, підтримував MMP і відновлював мітохондріальне дихання (Zuo et al., 2018). Повідомлялося, що загальні гінзенозиди (TGS) RG посилюють енергетичний метаболізм шляхом посилення метаболізму глюкози та активації пов’язаної з циклом TCA експресії білка в ішемізованому міокарді щурів (Wang et al., 2012).
Родіола рожева L. (RR)
Родіола рожева (Rhodiola Rosea L.), добре відома рослина в Тибеті, як було показано, лікує різноманітні серцево-судинні захворювання, включаючи ІХС, аритмію та стенокардію (Yu та ін., 2014; Liu та ін., 2016). Салідрозид (SAL) є основним компонентом, видобутим і очищеним з родіоли. Chang та ін. (2016) повідомили, що SAL має кардіопротекторну дію, регулюючи енергетичний метаболізм при пошкодженні міокарда, спричиненому оклюзією коронарної артерії. SAL підвищував вміст АТФ і глікогену через сигнальні шляхи AMPK/PGC-1axis і AMPK/NF kB (Chang XY та ін., 2016).
Ganoderma Lucidum (GL)
Ganoderma Lucidum (гриб Рейші), відомий в країнах Азії як Лінчжі, має антиоксидантну та кардіопротекторну дію. Екстракт Ganoderma Lucidum полегшив ішемічне пошкодження міокарда шляхом покращення мітохондріальної дисфункції у щурів ізоіндукованого інфаркту міокарда. Механізм може бути пов’язаний з діяльністю ферментів циклу ТСА та комплексів дихального ланцюга мітохондрій, таких як комплекси I, II, III та IV (Sudheesh et al., 2013). Полісахарид Ganoderma atrum (PSG-1) вважається основним біоактивним інгредієнтом Ganoderma Lucidum. Лі та ін. (2010) повідомили, що PSG-1 захищає кардіоміоцити за допомогою мітохондріального шляху при пошкодженні NRVM, спричиненому гіпоксією/реоксигенацією. PSG-1 зменшував викид цитохрому с з мітохондрій у цитозоль і підвищував рівень ММП (Li et al., 2010).
Gynostemma pentaphyllum (Thunb.) Makino (GPM)
Gynostemma pentaphyllum (Thunb.) Makino, як одне з ліків, що відновлюють Ци, має антигіпертензивну, антигіперліпідемічну, протизапальну та антистарільну дію (Zhang et al., 2018a). Гіпенозиди (GP) є основними сапонінами Gynostemma pentaphyllum, які мають кардіопротекторну дію на щурів з інфарктом міокарда. Ю та ін. (2016) виявили, що лікар загальної практики значно зменшує розмір інфаркту міокарда та захищає функцію мітохондрій при ішемічно-реперфузійному пошкодженні міокарда. GP підвищував рівень АТФ, регулював ферментативну активність дихального ланцюга мітохондрій і підтримував цілісність мітохондріальної мембрани (Yu et al., 2016).