Дієтичне використання джерел метіоніну та Bacillus Amyloliquefaciens CECT 5940 впливає на продуктивність росту, гепатопанкреатичну гістологію, травлення, імунітет і травну мікробіоту Litopenaeus Vannamei, що харчуються дієтами зі зниженим вмістом рибного борошна
Oct 30, 2023
Просте резюме: Прискорене розширення вирощування креветок вимагає джерел білка з високою поживною цінністю для створення кормів, які задовольняють харчові потреби креветок. Рибне борошно (FM) є основним джерелом білка для кормів для аквакорму. Однак його обмежена пропозиція та висока вартість спонукають до досліджень альтернативних джерел протеїну для створення більш прибуткових кормів, які сприяють стійкості аквакультури. Соєве борошно (SBM) і борошно із субпродуктів птиці (PBM) використовувалися як джерела білка для заміни рибного борошна, але дисбаланс незамінних амінокислот у них сприяє зниженню продуктивності росту креветок і негативно впливає на здоров’я креветок. Таким чином, метою дослідження було оцінити вплив заміни FM на SBM та PBM у дієтах, доповнених DL-Met, MET-MET (AQUAVI®), Bacillus amyloliquefaciens CECT 5940 (ECOBIOL®) та їх комбінаціями на продуктивність росту та здоров'я молоді Litopenaeus vannamei. Результати показали, що FM можна частково замінити SBM і PBM у кормах для креветок, доповнених 0.19% MET-MET або 0.06% MET-MET плюс 0,10% B. amyloliquefaciens CECT 5940 без негативно впливають на продуктивність росту та добробут Litopenaeus vannamei. Ці результати можуть бути цікавими для розробки кормів з низьким вмістом рибного борошна та сприяння стійкості аквакультури.

Переваги доповнення cistanche - підвищення імунітету
Анотація:У ході {{0}}-тижневого випробування годівлі досліджувався ефект заміни рибного борошна (FM) соєвим борошном (SBM) і борошном із субпродуктів птиці (PBM) у раціонах, доданих DL-Met, MET-MET (AQUAVI ®), Bacillus amyloliquefaciens CECT 5940 (ECOBIOL®) та їх комбінації на продуктивність росту та здоров’я молоді Litopenaeus vannamei. Загалом було розроблено шість експериментальних дієт відповідно до харчових потреб L. vannamei. Загалом 480 креветок (0.30 ± 0.04 г) було випадковим чином розподілено у 24 резервуари (4 повторення на кожну дієту , 20 креветок/бак). Креветок годували контрольною дієтою (CD; 200 г/кг рибного борошна) і п’ятьма дієтами з 50% заміною FM, доповненою різними джерелами метіоніну, пробіотиками (B. amyloliquefaciens CECT 5940) та їх комбінації: D1 (0.13% DL-MET), D2 (0.06% MET-MET), D3 ({{ 69}}.19% MET-MET), D4 (0,13% DL-MET плюс 0,10% B. amyloliquefaciens CECT 5940 і D5 (0,06% MET-MET плюс 0,10% B. amyloliquefaciens CECT 5940). Креветки, яких годували D3 і D5, мали значно вищий кінцевий тижневий приріст ваги та кінцева біомаса порівняно з креветками, яких годували CD (p < 0,05). Креветки, яких годували від D2 до D5, збільшували висоту епітеліальних клітин гепатопанкреасу (p < 0,05). (p < 0,05). Тим часом у креветок, яких годували D1, спостерігалося значне зниження регуляції імунозалежних генів (p < 0,05). Крім того, креветки, яких годували D3 і D5, збільшили кількість корисних прокаріотичних мікроорганізмів, таких як Pseudoalteromonas і Demequina, пов'язаних з метаболізмом вуглеводів та імунною системою. стимуляція. Крім того, креветки, яких годували D3 і D5, збільшили кількість корисних еукаріотичних мікроорганізмів, оскільки Aurantiochytrium і Aplanochytrium були пов’язані з виробництвом ейкозапентаєнової кислоти (EPA) і докозагексаєнової кислоти (DHA), які відіграють важливу роль у стимулюванні росту або зміцненні імунітету водних організмів. Таким чином, рибне борошно можна частково замінити до 50% SBM і PBM у раціонах, доповнених 0,19% MET-MET (AQUAVI®) або 0,06% MET-MET (AQUAVI®) плюс 0,10% B. amyloliquefaciens CECT 5940 (ECOBIOL®) і покращити продуктивність, здоров'я та імунітет білих креветок. Необхідні подальші дослідження, щоб дослідити синергічний ефект амінокислот і пробіотиків у раціонах вирощених креветок, а також оцінити, як SBM і PBM впливають на склад жирних кислот у дієтах зі зниженим вмістом рибного борошна та якість м’язів креветок. Тим не менш, ця інформація може бути цікавою для розробки кормів з низьким вмістом рибного борошна для аквакультури без впливу на ріст і добробут водних організмів.

Переваги Cistanche tubulosa- зміцнити імунну систему
Натисніть тут, щоб переглянути продукти Cistanche Enhance Imunity
【Запитуйте більше】 Електронна пошта:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Ключові слова: Litopenaeus vannamei; харчування креветок; заміна рибного борошна; метіонін; пробіотики; продуктивність; здоров'я; мікробіота
1. Введення
У 2022 році вирощування креветок дало майже 11,2 мільйона тонн, а тихоокеанська біла креветка (Litopenaeus vannamei) була найбільш репрезентативним видом із 52% від загального виробництва [1]. Стійкість і прибутковість виробництва аквакультури вимагають постачання сировини з високою поживною цінністю для композиції корму, яка відповідає харчовим потребам вирощуваних креветок [2,3]. Рибне борошно є основним інгредієнтом аквакорму завдяки своїй високій харчовій цінності [4]. Однак обмежена пропозиція та висока вартість рибного борошна вимагають дослідження альтернативних джерел кормів, які є більш прибутковими та сприяють стійкості аквакультури [5,6]. Попередні дослідження, в основному зосереджені на продуктивності креветок, повідомляли, що рибне борошно можна частково замінити різними тваринними та рослинними джерелами [6]. Серед джерел рослинного білка високий вміст білка має соєвий шрот. Однак наявність антихарчових факторів, погана засвоюваність і дисбаланс незамінних амінокислот (ЕАК), що впливає на травну мікробіоту, викликає запальну реакцію в органах травлення, низьку продуктивність і впливає на імунну відповідь водного організму [5,7, 8]. Субпродукти домашньої птиці є джерелом тваринного походження з високим вмістом білка та дефіцитом метіоніну та лізину, тому його використання в кормах зі зниженим вмістом рибного борошна може вплинути на ріст і добробут водних організмів [9]. Метіонін є дефіцитним EAA у кормах для аквакормів з низьким вмістом рибного борошна, і він необхідний для нормального росту [10], синтезу білка [11] та імунної функції [12] водних організмів. Тому додавання метіоніну в корми з низьким вмістом рибного борошна необхідне для збалансування амінокислот і зменшення негативного впливу на ріст і метаболізм водних організмів, що вирощуються на фермах [13]. Комерційно доступні різноманітні джерела метіоніну, такі як рацемічна суміш ізомерів D-Met і L-Met під назвою DL-метіонін (DL-Met) і суміш чотирьох різних стереоізомерів метіоніну (LD-Met-Met, DL-Met -Met, LL-Met-Met і DD-Met-Met) комерційно представлений як AQUAVI® (Met-Met) [10]. Однак AQUAVI® має кращі фізико-хімічні властивості, такі як дуже низька розчинність у воді та вище поглинання, ніж DL-Met [10,14]. З іншого боку, повідомлялося, що додавання пробіотиків (Bacillus subtilis) має позитивний вплив на продуктивність росту та здоров’я білих креветок (L. vannamei) та жаби-бика (Lithobates catesbeianus), яких годували кормами з низьким вмістом рибного борошна [15,16]. Пробіотики — це живі мікроорганізми, які використовуються в аквакормах, завдяки їх здатності покращувати використання корму, ферментативне перетравлення, профілактику патогенів, імунну відповідь і ріст [15]. Таким чином, включення пробіотиків у корми з рибним борошном може покращити здоров’я та добробут водних організмів [16]. Бактерії Bacillus широко використовуються в аквакультурі як пробіотики, оскільки вони здатні виробляти антимікробні сполуки та екзоферменти, які покращують перетравлення поживних речовин, інгібування патогенів, модуляцію імунної відповіді, підтримку цілісності кишечника та, як наслідок, продуктивність росту [17]. B. amyloliquefaciens має антибактеріальну активність і виробляє травні ферменти, які підтримують травлення [18].
Завдяки вищевикладеному альтернативні джерела рибного борошна в поєднанні з багатьма добавками використовувалися в аквакормах, щоб гарантувати постачання основних поживних речовин, покращити продуктивність, зберегти фізико-хімічний склад раціону та підтримувати якість водного середовища [19]. Отже, дієти з низьким вмістом рибного борошна, доповнені різними джерелами метіоніну та B. amyloliquefaciens, покращили продуктивність росту та ефективність годівлі вирощуваних водних організмів [3,7,8,20,21]. Крім того, повідомлялося про B. amyloliquefaciens CECT 5940 та його вплив на продуктивність росту та здоров’я курчат-бройлерів [22] і нільської тиляпії (Oreochromis niloticus) [21]. Однак кілька досліджень підтвердили вплив дієт з низьким вмістом рибного борошна та добавок на здоров’я травлення та імунну відповідь креветок. Таким чином, основною метою цього дослідження було оцінити вплив заміни FM на SBM та PBM у дієтах, доповнених DL-Met, MET-MET (AQUAVI®), B. amyloliquefaciens CECT 5940 (ECOBIOL®) та їх комбінаціями на ріст. продуктивність, гепатопанкреатична гістологія, травна ферментативна активність, транскрипційна відповідь імунозалежних генів і мікробний склад травної системи молоді тихоокеанської білої креветки (L. vannamei).
2. Матеріали та методи
2.1. Складання експериментальної дієти
Загалом було розроблено шість експериментальних дієт відповідно до харчових вимог L. vannamei [23] та рекомендацій виробника (група досліджень і розробок Aqua Evonik). Контрольна дієта (CD) була складена так, щоб містити суміш білків FM (39%), білків SBM (53%) і білків PBM (8%), як типова комерційна дієта для креветок. SBM і PBM були основними альтернативними джерелами білка для заміни FM, тоді як пшеничне борошно використовувалося як сполучний і наповнювальний інгредієнт. Риб’ячий жир використовувався як основне джерело ліпідів для задоволення потреб креветок у n-3 незамінних жирних кислотах. CD містив 2{{10}}0 г/кг рибного борошна без будь-яких добавок. Інші п’ять дієт (D1–D5), де SBM і PBM замінили FM на 50%, були доповнені різними джерелами метіоніну, B. amyloliquefaciens та їх комбінаціями. D1: 0.13% DL-MET, D2: 0.06% MET-MET (AQUAVI®), D3: 0,19% MET-MET (AQUAVI®), D4 : 0,13% DL-MET плюс 0,10% B. amyloliquefaciens CECT 5940 (ECOBIOL®) і D5: 0,06% MET-MET (AQUAVI®) плюс 0,10% B. amyloliquefaciens CECT 5940 (ECOBIOL®). Крім того, коефіцієнт стабільності води оцінювали як фізичну характеристику раціону за раніше описаним методом [24]. Рецептура, приблизний склад і значення водостійкості експериментальних дієт наведені в таблиці 1.
Таблиця 1. Інгредієнти та приблизний склад експериментальних раціонів (г/кг сухої маси).

Таблиця 1. Продовж.

2.2. Креветки, випробування годування та відбір зразків
Молодь L. vannamei була отримана з креветкової ферми в Сонора, Мексика. Відповідно до процедур, описаних у Посібнику з діагностичних тестів для водних тварин Всесвітньої організації охорони здоров’я тварин, креветки були вільні від патогенів [25]. Перед випробуванням годівлі всі креветки були акліматизовані в лабораторії аквакультури в 1500--літрових резервуарах з морською водою в контрольованих умовах (температура 30 ± 0,5 ◦C, розчинений кисень Більше або дорівнює 4 мг/л, солоність 37 г/л, pH більше або дорівнює 7 і фотоперіод 12 світлових годин) і годували комерційним кормом протягом 7 днів. На початку 480 здорових креветок (0,30 ± 0,02 г) голодували протягом 24 годин і випадковим чином розподіляли по 24 круглих резервуарах (об’ємом 150 л) із щільністю 20 креветок на резервуар (еквівалентно щільності 133 креветок/м3). Для кожного дієтичного лікування було випадково призначено чотири копії резервуарів. Креветок годували до насичення з початковим раціоном 12% їхньої біомаси, розділеним на три прийоми протягом дня (8:00, 13:00 і 16:00 год) протягом 56 днів, коригується щодня залежно від наявності або відсутності залишків корму. Були зареєстровані температура (27,84–28,36 ◦C), солоність (36,98–37,07 г/л), розчинений кисень (400–5,17 мг/л) і pH (7,41–7,84). Кожен день міняли 30% води. Нез'їдений корм, фекалії, линьки і мертвих креветок видаляли щодня. Після випробування з годуванням і 24-годинного періоду голодування три креветки були випадковим чином відібрані з кожної повторності, щоб отримати 400 мкл гемолімфи для аналізу експресії генів [26]. Креветки, у яких попередньо зняли кров, розрізали в асептичних умовах, щоб отримати цілий кишечник і печінково-підшлункову залозу, а потім зберігали при -80 ◦C до визначення травної ферментативної активності та аналізу мікробіома. Крім того, дванадцять (три креветки/реплікати) цілих креветок були випадковим чином відібрані з кожної обробки та фіксовані в розчині AFA Davidson для гістологічного аналізу.
2.3. Ефективність зростання
Усі креветки були зважені та підраховані для розрахунку продуктивності росту відповідно до рівнянь, наведених у попередніх дослідженнях [27–29].
Кінцева вага=(Σ Кінцева індивідуальна вага)/кінцева кількість креветок. Щотижневий приріст ваги=(кінцева вага − початкова вага)/кількість тижнів. Питома швидкість росту=100 × (ln кінцева вага − ln початкова вага)/день експерименту. Рівень виживання=100 × (кінцева кількість креветок/початкова кількість креветок). Кінцева біомаса=Кінцева вага × Кінцева кількість креветок. Споживання корму=Надходження корму (суха вага) − зібраний корм (суха вага). Коефіцієнт конверсії корму=Споживання корму/кінцева біомаса.
2.4. Гепатопанкреас Гістологія
Зразки гепатопанкреасу креветок, фіксовані в розчині Девідсона, обробляли за методом, описаним Беллом і Лайтнером [30]. Гістологічні зрізи товщиною 4 мкм вирізали за допомогою ротаційного мікротома (LEICA RM2115RT). Фарбування тканини, спостереження за слайдами та оцифрування зображень проводили відповідно до методу, описаного Casillas-Hernández [31]. Зображення тканин використовували для вимірювання висоти клітин гепатопанкреасу за допомогою системи цифрових зображень Image-Pro Premier програмного забезпечення v9.0 (Media Cyvernetics Inc., Rockville, MD, USA).

cistanche tubulosa - покращує імунну систему
2.5. Діяльність травних ферментів
Кишечник і печінково-підшлункову залозу окремо гомогенізували до співвідношення 10% з 0,9% сольовим розчином і центрифугували при 3500 об/хв протягом 10 хвилин при 4 ◦C, і супернатант негайно аналізували для аналізів травних ферментів за допомогою пристрою для зчитування мікропланшетів (Bio -Рад, Геркулес, Каліфорнія, США). Активність протеази та ліпази аналізували за допомогою комерційного набору (Sigma-Aldrich®, Louis, MO, USA). Активність амілази вимірювали з використанням розчинного крохмалю як субстрату [32]. Концентрацію загального розчинного білка визначали за принципом зв’язування білка з барвником, використовуючи як стандарт бичачий сироватковий альбумін [33]. Усі аналізи проводили в трьох повторних зразках. Активність травних ферментів виражається як U/мг білка.
2.6. Транскрипційна відповідь імунозалежних генів
Гемолімфу центрифугували при 3500 об/хв протягом 10 хв при 4 ◦C для відділення гемоцитів від плазми. Загальну РНК з гемоцитів екстрагували реагентом TRIzol (Invitrogen, Карлсбад, Каліфорнія, США) і обробляли ДНКазою, що не містить РНК (Promega®, Медісон, Вісконсин, США). кДНК синтезували з тотальною РНК (500 нг) за допомогою системи зворотної транскрипції ImProm-II™ (Promega®) та оліго d(T)20 (T4OLIGO). Синтез кДНК здійснювали шляхом зворотної транскрипції при 42 ◦C протягом 60 хв; потім зворотну транскриптазу інактивували при 70 ◦C протягом 15 хвилин, щоб зупинити реакцію. кДНК розбавляли 80 мкл надчистої води, а 5 мкл використовували як матрицю для реакції кількісної ПЛР у реальному часі (кПЦР). Транскрипційну відповідь аналізували з п'яти імунозалежних генів і -актину як еталонного гена (табл. 2) [34]. КПЦР проводили на системі ПЛР у реальному часі StepOne (Thermo Fisher Scientific) з використанням набору SensiFAST™ SYBR® Hi-ROX (Bioline™, Лондон, Великобританія). Умовами qPCR були початкова денатурація при 95 ◦C протягом 10 хвилин, потім 40 циклів денатурації при 95 ◦C протягом 15 секунд і відпал/подовження при 60 ◦C протягом 1 хвилини. Для кожної пари праймерів проводили аналіз кривої дисоціації (60–95 ◦C) при швидкості переходу температури 0,5 ◦C/с. Метод відносної кількісної оцінки використовувався для аналізу експресії генів відповідно до Rodriguez-Anaya [35] і Casillas-Hernández [36].
Таблиця 2. Специфічні праймери, що використовуються для транскрипційної відповіді імунозалежних генів L. vannamei.

2.7. Екстракція ДНК та аналіз секвенування
Геномну ДНК гепатопанкреасу та кишечника 12 креветок за одну обробку екстрагували за допомогою Quick-DNA™ Fecal/Soil Microbe (Zymo Research, Irvine, CA, USA), дотримуючись інструкцій виробника. Концентрацію ДНК кількісно визначали за допомогою спектрофотометра NanoDrop 2000 (Thermo-Fisher Scientific, Waltham, MA, США), а якість ДНК оцінювали за допомогою електрофорезу в агарозному гелі (1%, мас./об.). Потім зразки геномної ДНК були передані Лабораторії мікробної геномики (CIAD, Мексика) для підготовки бібліотеки ДНК та секвенування з використанням стандартних протоколів Illumina для ампліфікації [37]. Коротко, варіабельну область V4 генів 16S рРНК і 18S рРНК ампліфікували за допомогою ПЛР з такими праймерами з використанням адаптерів Illumina: 16S-V4_515F (50 - GTG CCA GCM GCC GCG GTA A{{ 13}} ), 16S-V4_806R (50 -TAA TCT WTG GGV HCA TCA GG-30 ), 18S-V9_Euk_1391F ( 50 -GTA CAC ACC GCC CGT C-30 ) і 18S-V9_EukBr (50 -TGA TCC TTC TGC AGG TTC ACC TAC-30 ). Нарешті, амплікони були кількісно визначені в Qubit, змішані в еквімолярному пулі та секвеновані на платформі Illumina Miniseq за стандартних умов (300 циклів, 2 × 150).
2.8. Біоінформаційний аналіз
Файли FASTQ зі зчитувань парного кінця були проаналізовані за допомогою пакета DADA2 v1.24.0 [38]. Робочий процес аналізу послідовності включав фільтрацію, дереплікацію, вибірковий висновок, ідентифікацію химери та об’єднання парних зчитувань (PE) для групування їх у ASV (варіанти послідовності ампліконів). DADA2 включає «наївний байєсівський» метод із використанням баз даних SILVA як для області 16S-V4 (silva_nr99_v138.1_train_set.fa), так і область 18S-V9 (silva_132.18s.99_rep_set.dada2.fa). Таксономічну інформацію аналізували за допомогою Phyloseq V1.40.0 і пакету мікробіомів v1.18.0 для отримання альфа- та бета-різноманітності та значень ординації [37]. Бета-різноманіття було проведено на основі незваженої відстані UniFrac і візуалізовано за допомогою PCoA, створеного за допомогою ggplot у R. Нарешті, багатовимірні відмінності на рівні спільноти між групами були визначені кількісно за допомогою пермутаційного багатоваріантного дисперсійного аналізу (PERMANOVA) [39]. Остаточну таблицю ASV з послідовностей 16S також використовували як вхідні дані для функціонального метагеномного прогнозу за допомогою PICRUSt [40]. Вміст шляху KEGG, отриманий за допомогою PICRUst, був нормалізований, а потім використаний для отримання метагеномних функціональних прогнозів на різних ієрархічних рівнях KEGG (1, 2 і 3) [41]. Секвенування Illumina з використанням праймерів для гіперваріабельної області V4 в гені 16S рРНК дало 976 065 зчитувань PE 150 bp, що відповідають кишечнику та гепатопанкреасу L. vannamei із середнім значенням 81 338 зчитувань на зразок. Після процесу фільтрації якості та усунення химер було збережено в середньому 58 235 послідовностей на зразок, що еквівалентно 71,6%, і були призначені 709 ASV. З іншого боку, в результаті секвенування V9-18S rDNA було отримано 871 699 зчитувань PE 150 bp із середнім показником 72 642 на зразок. Після робочого процесу аналізу послідовності зчитування було зменшено приблизно на 12,7%. Однак під час таксономічної ідентифікації та групування ASV більшість послідовностей відповідали ДНК хазяїна (L. vannamei), виключаючи зразки з гепатопанкреасу. Таким чином, наведені дані щодо характеристики еукаріотичної мікробіоти відповідають мікроорганізмам, присутнім у кишечнику. Використаний набір даних складався з 12 970 послідовностей, які були призначені 43 ASV.
2.9. Статистичний аналіз
Результати росту, висоту клітин гепатопанкреасу, травну ферментативну активність і транскрипційну відповідь імунозалежних генів оцінювали за допомогою одностороннього дисперсійного аналізу (ANOVA). Якщо спостерігалася будь-яка значущість, для порівняння середніх застосовували тест Тьюкі. Статистичний аналіз проводився за допомогою Statgraphics Centurion XVI. Значущість була встановлена на рівні ймовірності 95%.
3. Результати
3.1. Ефективність зростання
Значення продуктивності росту представлені в таблиці 3. Порівняно з CD, найвищі значення продуктивності росту (кінцева вага, приріст ваги та кінцева біомаса) спостерігалися у креветок, яких годували D3 та D5, які були значно вищими, ніж креветки, яких годували D1 (p < 0.05), але без статистичної різниці з креветками, яких годували D2 і D4, і (p > 0.05). Найнижче значення коефіцієнта конверсії корму спостерігалося у креветок, яких годували D3, але не було виявлено істотної різниці в FCR серед усіх дієтичних обробок (p > 0.05). У той час як споживання корму значно зменшилося (p < 0,05) у креветок, яких годували D1, і значно збільшилося (p < 0,05) у креветок, яких годували D5. Не було виявлено суттєвої різниці в виживаності серед усіх дієтичних методів лікування (p> 0,05).
Таблиця 3. Вплив експериментальних дієт на продуктивність росту Litopenaeus vannamei.

3.2. Гепатопанкреатична гістологія
Гепатопанкреас креветок мав добре організовану структуру (рис. 1А). За винятком креветок, яких годували D1, усі креветки, яких годували дієтою зі зниженим вмістом рибного борошна, мали вищу (p < 0.05) висоту епітеліальних клітин гепатопанкреасу, ніж креветки, яких годували CD (рис. 1B).
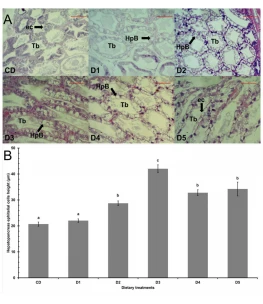
Малюнок 1. Гістологія печінки підшлункової залози креветок L. vannamei, яких годували контрольною дієтою та 50% заміною рибного борошна. (A) Світлові мікрофотографії поздовжніх зрізів (4 мкм) гепатопанкреасу, пофарбованих гематоксиліном і еозином, демонструють добре організовану структуру. Стрілки вказують на нормальні структури епітеліальних клітин канальців, включаючи секреторні (В-клітини) клітини. Масштаб: 100 мкм. (B) Епітеліальні клітини гепатопанкреасу креветок. Дані представлені як середнє ± SE, значення з різними буквами значно відрізняються (p < 0.05). Скорочення: канальці (Tb), епітеліальні клітини (EC) і B-клітини (HpB). CD (20{{30}} г/кг FM), D1 (0,13% DL-MET), D2 (0,06% MET-MET), D3 (0,19% MET-MET) , D4 (0,13% DL-MET плюс 0,10% B. amyloliquefaciens CECT 5940) і D5 (0,06% MET-MET плюс 0,10% B. amyloliquefaciens CECT 5940).
3.3. Активність травних ферментів
Вплив різних дієтичних джерел метіоніну та Bacillus amyloliquefaciens на активність травних ферментів кишечника та гепатопанкреасу в раціоні з обмеженим вмістом рибного борошна L. vannamei показаний у таблиці 4. Активність амілази, протеази та ліпази гепатопанкреасу креветок, яких годували D3, була значною. вище (p < 0.05), ніж у креветок, яких годували CD, тоді як на активність травних ферментів кишечника це не вплинуло (p > 0.05). У гепатопанкреасі креветок, яких годували D1, спостерігалося найнижче значення амілази та ліпази, тоді як у кишечнику активність травних ферментів мала найнижчі значення, але не спостерігалося істотних відмінностей (p > 0,05) порівняно з креветками, яких годували CD.
Таблиця 4. Вплив експериментальних дієт на активність травних ферментів Litopenaeus vannamei.

3.4. Транскрипційна відповідь імунозалежних генів
Була визначена транскрипційна відповідь імунозалежних генів білих креветок, яких годували дієтою зі зниженим вмістом рибного борошна з добавками, і порівнювали її з креветками, яких годували CD (рис. 2). За винятком креветок, яких годували D1, усі імунозалежні гени, проаналізовані в цьому дослідженні, мали вищу експресію, ніж креветки, яких годували CD. Hc і pPO значно підвищувалися (p < 0.05) у креветок, яких годували D3 і D5. LGBP значно (p < 0.05) підвищувався у креветок, яких годували D2 і D3. MnSOD був значно підвищений (p < 0,05) у креветок, яких годували D2, D3 і D5. HSP60 був значно підвищений (p < 0,05) у креветок, яких годували D5. Найнижчі значення транскрипційної відповіді імунозалежних генів спостерігалися у креветок, яких годували D1, порівняно з усіма дієтичними методами лікування.

Рисунок 2. Транскрипційна реакція імунозалежних генів контрольної дієти, яку годували креветками, і дієти, що заміняла 50% рибного борошна. (A) гемоціанін (Hc), (B) профенолоксидаза (pPO), (C) ліпополісахарид і білок, що зв’язує глюкан (LGBP), (D) цитозольна супероксиддисмутаза марганцю (MnSOD) і (E) білок теплового шоку 6{ {11}} (HSP60). Дані представлені як середнє ± SE, значення з різними буквами значно відрізняються (p < 0.05). Скорочення: CD (20{{30}} г/кг FM), D1 (0,13% DL-MET), D2 (0,06% MET-MET), D3 (0,19% MET- MET), D4 (0,13% DL-MET плюс 0,10% B. amyloliquefaciens CECT 5940) і D5 (0,06% MET-MET плюс 0,10% B. amyloliquefaciens CECT 5940).
3.5. Аналіз травної мікробіоти та функціональне прогнозування
Аналіз кривої розрідження показав, що спостережуваних видів на зразок було достатньо як для послідовностей 16S-V4 (Рис. 3A), так і для послідовностей 18S-V9 (Рис. 4A). Що стосується альфа-різноманіття, результати 16S показали, що індекси Chao1, Шеннона та Сімпсона печінки підшлункової залози були вищими, ніж кишечника (рис. 3B). З іншого боку, результати 18S показали, що всі індекси альфа-різноманітності зменшилися в кишечнику креветок, яких годували дієтами з низьким вмістом рибного борошна, порівняно з контролем (рис. 4B). Однак не було суттєвих відмінностей між дієтичними методами лікування в результатах 16S і 18S.
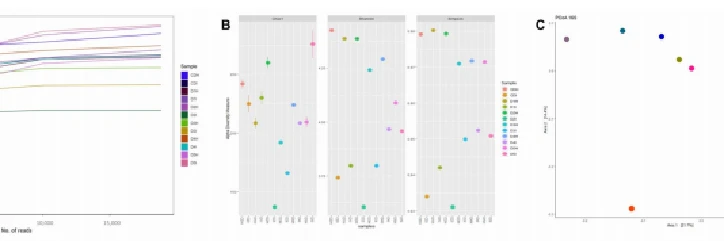
Малюнок 3. Секвенування гена 16S рРНК кишечника та гепатопанкреасу з контрольної дієти, яку годували креветками, і дієти, що заміняла 50% рибного борошна. (A) Крива розрідження, (B) Альфа-різноманіття та (C) Структура мікробіоти, візуалізована за допомогою графіків аналізу головних координат (PCoA). Скорочення: Кишечник (I) і гепатопанкреас (H). CD (200 г/кг FM), D1 (0.13% DL-MET), D2 ({{20}}.{{27 }}6% MET-MET), D3 (0,19% MET-MET), D4 (0,13% DL-MET плюс 0,10% B. amyloliquefaciens CECT 5940) і D5 (0,06% MET-MET плюс 0,10% B. amyloliquefaciens CECT 5940) ).
Вплив експериментальної дієти на структуру мікробіоти визначали за допомогою відстані UniFrac і візуалізували за допомогою графіків PCoA. Результати виявили чіткий розподіл між експериментальними дієтами, але без суттєвих відмінностей у спільнотах прокаріотів з кишечника або гепатопанкреасу (рис. 3C), а також еукаріотичної мікробіоти з кишечника (рис. 4C). Проте бета-аналіз різноманіття показав чітке відокремлення між спільнотами прокарієвих отиків від кишківника та гепатопанкреасу (рис. 3C).
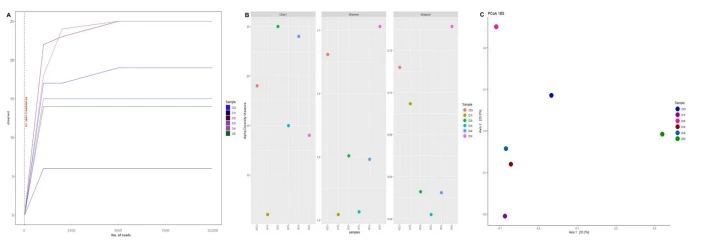
Малюнок 4. Секвенування гена 18S рРНК кишечника з контрольної дієти, яку годували креветками, і 50% дієт із заміною рибного борошна. (A) Крива розрідження, (B) Альфа-різноманіття та (C) Структура мікробіоти, візуалізована за допомогою графіків аналізу головних координат (PCoA). Абревіатура: Кишечник (I). CD (200 г/кг FM), D1 (0.13% DL-MET), D2 ({{20}}.{{27 }}6% MET-MET), D3 (0,19% MET-MET), D4 (0,13% DL-MET плюс 0,10% B. amyloliquefaciens CECT 5940) і D5 (0,06% MET-MET плюс 0,10% B. amyloliquefaciens CECT 5940) ).
На основі результатів прокаріотичної мікробіоти було ідентифіковано загалом 19 різних типів бактерій. Proteobacteria були домінуючими типами в кишечнику креветок, тоді як Pro teobacteria та Actinobacteria були домінуючими типами в гепатопанкреасі креветок. У кишечнику креветок, які отримували D3 і D5, спостерігалося збільшення відносної чисельності Actinobacteria, тоді як відносна чисельність Bacteroidota дещо зменшувалася. У гепатопанкреасі креветок, яким годували D1, D2 і D4, спостерігалося невелике збільшення відносної чисельності Bacteroidota, тоді як у гепатопанкреасі креветок, які отримували D3 і D5 Actinobacteria, відносна чисельність була збільшена (Малюнок 5A). На рівні роду Pseudoalteromonas був найбільш поширеним у кишечнику креветок, тоді як Demequina був найбільш поширеним у гепатопанкреасі креветок. Demequina спостерігав низький приріст у кишківнику креветок, які отримували D3 та D5, тоді як Lysinimicrodium та Ruegeria були збільшені в гепатопанкреасі креветок, які отримували D3 та D5 (рис. 5B). Результати функціональних категорій (KEGG рівень 2) показали, що бактеріальні послідовності були пов’язані з клітинними процесами та шляхами метаболізму (рис. 5C і додаткова таблиця S1). Метаболізм амінокислот, метаболізм вуглеводів, кофактори та метаболізм вітамінів були найбільш поширеними в метаболічних шляхах, тоді як рухливість клітин була найбільш поширеною в клітинних процесах. Після видалення зчитування секвенування з ДНК хазяїна спостерігали три типи еукаріотичної мікробіоти. Тип SAR (Stramenopiles, Alveolate y Rhizaria) був найпоширенішим у всіх кишках креветок, однак збільшення типу Opisthokonta спостерігалося в кишечнику креветок, яких годували D5 (Рисунок 6A). На рівні роду Aplanochytrium був найбільш поширеним у кишечнику креветок, яких годували від D2 до D5, але кількість була помітно вищою в D5. Некультивований альвеолат був збагачений компакт-диском, що годувався кишечником креветок. Auranti ochytrium був найбільш поширеним у D2 до D4 з більшою кількістю у D3. Нарешті, Ebria була найбільш поширена в кишечнику креветок, яких годували D1 (рис. 6B).

Малюнок 5. Прокаріотична мікробіота кишечника та гепатопанкреасу з контрольної дієти, яку годували креветками, і 50% дієти замінника рибного борошна. (A) Десятка найбільшої чисельності типів. (B) Аналіз теплової карти 40 найвищих родів і (C) Аналіз теплової карти прогнозування функції на основі аналізу шляхів KEGG. Скорочення: кишечник (I) і печінково-підшлункова залоза (H). CD (200 г/кг FM), D1 ({{20}}.13% DL-MET), D2 (0.06% MET -MET), D3 (0,19% MET-MET), D4 (0,13% DL-MET плюс 0,10% B. amyloliquefaciens CECT 5940) і D5 (0,06% MET-MET плюс 0,10% B. amyloliquefaciens CECT 5940).

Рисунок 6. Еукаріотична мікробіота кишечника з контрольної дієти, яку годували креветками, і 50% заміни рибного борошна. (A) Достаток типів. (B) Теплова карта чисельності родів. Абревіатура: кишка (I). SAR (Stramenopiles, Alveolate y Rhizaria). CD (200 г/кг FM), D1 (0.13% DL-MET), D2 (0.06% MET -MET), D3 (0.19% MET-MET), D4 (0,13% DL-MET плюс 0,10% B. amyloliquefaciens CECT 5940) і D5 (0,06% MET-MET плюс 0,10% B. amyloliquefaciens CECT 5940).
4. Обговорення
4.1. Ефективність зростання
Попередні дослідження оцінювали вплив дієт з обмеженим вмістом рибного борошна, доповнених різними дієтичними джерелами метіоніну, на продуктивність росту L. vannamei, наприклад корм для креветок із 5% до 10% рибного борошна та доповнений рівнем між {{15 }}.15% і 1,7% від MET-MET (AQUAVI®) або 3% від DL-MET [2,3,8,20,42,43]. Тим не менш, дослідження з аналогічними умовами культивування, у якому використовували молодь креветок (L. vannamei) з початковою вагою 0.98 ± 0.02 г, припустило 0 .20% MET-MET (AQUAVI®) для кращої продуктивності росту, коли креветки отримували корм зі зниженою кількістю рибного борошна [20]. DL-MET було доведено на молоді креветки з початковою вагою 3.0 г, що передбачає рівні між 0.{{50}}6–0.3 0% для хорошої продуктивної реакції, коли креветки годували кормом зі зниженою кількістю рибного борошна [2]. З іншого боку, вплив B. amyloliquefaciens (104 і 1{{90}}3 UFC/мл), розчинених у воді системи біофлок для вирощуваного L. vannamei, був повідомлено [44, 45], але немає жодних повідомлень про вплив цього пробіотика, доданого до корму зі зниженим вмістом рибного борошна, на продуктивність росту L. vannamei. Таким чином, це дослідження оцінювало ефект заміни FM на SBM і PBM у дієтах креветок, доповнених 0,13% DL-MET (D1), 0,06% MET-MET (D2), 0,19% MET-MET (D3) і відповідно до рекомендацій виробника ми використовували комбінації 0,13% DL-MET плюс 0,1% B. amyloliquefaciens CECT 5940 (еквівалентно 109 UFC/г) (D4) і 0,06% MET-MET плюс 0,1% B. amyloliquefaciens CECT 5940 (D5). Усі дієти зі зниженим вмістом рибного борошна, доповнені джерелами метіоніну та пробіотиками, показали хороші показники стабільності води. Таким чином, дієти зі зниженим вмістом рибного борошна, оцінені в цьому дослідженні, відповідають попереднім звітам, і всі дієти показали хорошу реакцію на зростання креветок. Тим не менш, креветки, яких годували D1, мали нижчі параметри продуктивності, тоді як креветки, яких годували D3 і D5, мали вищі параметри продуктивності. Значно низька продуктивність росту креветок, яких годували D1, може бути пов’язана з низьким споживанням корму через дефіцит метіоніну, що спричиняє зниження смакових якостей аквакормів зі зниженим вмістом рибного борошна [20]. Висока продуктивність росту креветок D3 порівняно з креветками, яких годували D1 і D2, могла бути наслідком дефіциту та джерела метіоніну. Вищезазначене може бути тому, що було повідомлено, що дипептид MET MET має низьку розчинність у воді та високу біодоступність, які можуть ефективно використовуватися креветками, сприяючи кращим показникам росту [2,10,14]. Креветки, яких годували D5, також мали високі показники росту навіть з тим самим рівнем і джерелом метіоніну в D2, але з додаванням 0,10% B. amyloliquefaciens CECT 5940. Високі показники росту могли бути пов’язані з корисними властивостями пробіотика, які включають антимікробну активність і вироблення -амілази, целюлази та протеази, які підвищують перетравність і всмоктування поживних речовин [46]. Крім того, у попередньому дослідженні повідомлялося, що B. amyloliquefaciens є продуцентом метіоніну [47], і це може сприяти підтримці балансу цього EAA в D5. Крім того, повідомлялося, що суміш кормових добавок може підвищити ефективність росту водних організмів [48–50] і бройлерів [51]. Таким чином, заміна 50% FM на SBM і PBM у раціонах, доповнених 0,19% MET-MET і 0,06% MET-MET плюс 0,10% B. amyloliquefaciens CECT 5940, може покращити використання поживних речовин і, як наслідок, продуктивність росту креветок. Важливо відзначити, що SBM і PBM мають високий рівень жирних кислот, але n-3 довголанцюгових поліненасичених жирних кислот мають дефіцит цих джерел білка [52]. У цьому контексті необхідні подальші дослідження, щоб визначити, як використання SBM і PBM впливає на склад жирних кислот у дієтах зі зниженим вмістом рибного борошна та якість м’язів креветок.

Цистанче корисний для чоловіків - зміцнює імунну систему
4.2. Гепатопанкреатична гістологія
Печінково-підшлункова залоза креветок є органом травлення і відіграє важливу роль у секреції травних ферментів, транспортуванні поживних речовин, зберіганні та поглинанні, отже, її функція є ключовою до продуктивності росту та здоров’я креветок [30,53]. Однак було повідомлено, що дієти зі зниженим вмістом рибного борошна можуть змінити структурну морфологію органів травлення та погіршити фізіологічні умови водних організмів, що призведе до затримки росту [54]. Гепатопанкреатична гістологія була проаналізована як показник продуктивності росту креветок, здоров’я та статусу харчування. Пошкодження структури гепатопанкреасу не спостерігалося, В-клітини були найбільш поширеними гепатопанкреатичними клітинами, і висота їхнього епітелію значно зросла під час усіх дієт, за винятком креветок, яких годували D1, які мали подібну реакцію до контрольної дієти. Результати свідчать про те, що печінково-підшлункова залоза чутлива до включення різних дієтичних джерел метіоніну та B. amyloliquefaciens у дієти зі зниженим вмістом рибного борошна, збільшуючи B-клітини, впливаючи на секрецію травних ферментів, поглинання та засвоєння поживних речовин, а також на використання корму, як повідомлялося в інших дослідженнях при використанні. альтернативні джерела рибного борошна та добавки [53,55–58]. Крім того, повідомлялося, що добавки метіоніну можуть зменшити зміни гепатопанкреасу через його дефіцит у дієтах з низьким вмістом рибного борошна [8]. Таким чином, згідно з гістологічним аналізом, немає жодних доказів токсичності, спричиненої скороченим раціоном рибного борошна, доповненим різними джерелами дієтичного метіоніну та B. amyloliquefaciens у L. vannamei hepatopancreas.
4.3. Аналіз травних ферментів
Травна активність ферментів є фізіологічним процесом, який покращує перетравлення та засвоєння поживних речовин, а отже, є ключовим фактором для сприяння продуктивності росту креветок [59]. Тим не менш, попередні дослідження показали, що активність травних ферментів значно зменшилася при зменшенні дієти з рибним борошном без добавок [60,61]. Активність травних ферментів використовували як індикатор функції травлення креветок. У цьому дослідженні креветки, яких годували D3, покращили (p < 0,05) активність гепатопанкреатичних травних ферментів порівняно з усіма групами, і не було виявлено значних відмінностей в активності кишкових травних ферментів. Загалом низька активність травних ферментів була помічена в обох органах креветок, яких годували D1. Відповідно до цих результатів, додавання метіоніну підвищило активність травних ферментів у червоного морського ляща (Pagrus major) [62], білого амура (Ctenopharyngodon idella) [63], білої креветки (L. vannamei) [2,3,20] та риба роху (Labeo rohita) [59]. Вплив кормів, доповнених B. amyloliquefaciens, на активність травних ферментів креветок у L. vannamei не повідомлялося, але відомо, що пробіотики підвищують активність травних ферментів і покращують використання корму та травлення [64]. Крім того, кілька робіт оцінювали різні корми для аквакультури, доповнені добавками в поєднанні з пробіотиками, і показали прискорення процесу травлення. [48,50]. Тим не менш, невідповідність активності травних ферментів була виявлена при вирощуванні курчат-бройлерів з органічними кислотами, пробіотиками та комбінаціями, можливо, через те, що рівень індукції кормових добавок і комбінацій був на неоптимальному рівні [51]. Це дослідження також повідомило про невідповідність активності гепатопанкреатичних травних ферментів у креветок, яких годували D3, D4 і D5. Однак результати свідчать про те, що згадані раніше добавки не впливають на функції травлення креветок.
4.4. Транскрипційна відповідь імунозалежних генів
Транскрипційна відповідь імунозалежних генів дуже важлива для отримання даних про стан здоров’я креветок [35]. Однак було повідомлено, що дієти з низьким вмістом рибного борошна погіршують імунну та антиоксидантну реакцію креветок через незбалансованість поживних речовин, високі антипоживні фактори та вміст клітковини, які впливають на споживання корму, смакові якості та засвоюваність [56,65–67]. Раніше ми досліджували вплив джерела та рівня білка на імунозалежні гени (Hc, pPO, LGBP), антиоксидантну здатність (MnSOD) і стійкість до стресу (HSP60) і припустили, що захисні механізми не впливають коли креветок годували дієтами, що містять рослинний білок (30–35%) на середніх рівнях [35]. З іншого боку, повідомлялося, що дієти з низьким вмістом рибного борошна негативно впливають на імунну відповідь креветок, коли рибне борошно зменшується з 250 г/кг до 100 г/кг [68]. Тим не менш, антиоксидантна реакція модулювалася без впливу на окислювальний статус печінки та кишечника, коли європейського морського окуня (Dicentrarchus labrax) годували низьким вмістом рибного борошна з додаванням рівня DL-Met на 12% нижче встановленої потреби [69]. Крім того, імунна відповідь і антиоксидантна здатність були покращені, коли білу креветку (L. vannamei) [8] і нільську тиляпію (O. niloticus) [14] годували дієтою з низьким вмістом рибного борошна з 0,15% MET-MET. Крім того, дослідження показало, що нільська тиляпія (O. niloticus), яку годували дієтами з низьким вмістом рибного борошна, доповненими Spirulina platensis і B. amyloliquefaciens, покращила імунну відповідь і антиоксидантну здатність, але знизила стійкість до стресу [21]. Результати цього дослідження показали, що транскрипційні відповіді генів, пов’язаних з імунітетом, антиоксидантною здатністю та стійкістю до стресу, покращилися, коли креветок годували D2, D3, D4 та D5, що цікаво, оскільки це вказує на те, що добавки метіоніну та пробіотиків можуть позитивно модулювати захисні механізми, зменшуючи ураження, спричинені кормами з низьким вмістом рибного борошна. Навпаки, низька транскрипційна відповідь імунозалежних генів, що спостерігається у креветок, яких годували D1, могла бути наслідком дефіциту метіоніну. Однак, враховуючи продуктивність, найкращими дієтичними обробками можуть бути D3 і D5 без впливу на ріст і здоров’я креветок.
4.5. Аналіз травної мікробіоти та функціональне прогнозування
Травна система креветок містить спільноти мікроорганізмів, у яких домінують бактерії, але також можуть бути присутні еукаріотичні мікроорганізми, створюючи велику мікробну екосистему, яка називається мікробіотою [70]. Мікробіота травної системи креветок впливає на імунітет або стійкість, вироблення корисних метаболітів, а також перетравлення та засвоєння поживних речовин [71,72]. Раціон є одним із основних факторів навколишнього середовища, що впливає на мікробіоту травної системи креветок [73]. У цьому дослідженні оцінювали вплив дієт з низьким вмістом рибного борошна на різноманітність, структуру та відносну чисельність прокаріотичних і еукаріотичних мікроорганізмів з кишечника та гепатопанкреасу L. vannamei за допомогою секвенування 16S і 18S. Результати дослідження свідчать про те, що різноманітність і структура мікробіоти (прокаріотичної та еукаріотичної) не відрізняються при дієтичному лікуванні. Проте порівняння бета-різноманіття показало, що кишкова прокаріотична мікробіота групується окремо від гепатопанкреатичної прокаріотичної мікробіоти, що свідчить про унікальну екологічну нішу відповідно до органів травлення креветок [74]. Таким чином, спеціалізовані мікроорганізми як у кишечнику, так і в гепатопанкреасі допомагають покращити енергію, яку ефективно отримує хазяїн, і метаболічні процеси, необхідні для росту, імунної відповіді, перетравлення поживних речовин і засвоєння [75]. Як буде пояснено нижче, результати дослідження свідчать про те, що велика кількість як прокаріотичних, так і еукаріотичних мікроорганізмів може збільшитися та допомогти креветкам ефективно використовувати поживні речовини з дієти з низьким вмістом рибного борошна для метаболічних процесів, необхідних для отримання енергії, росту, імунітету, травлення та харчування. Відповідно до великої кількості прокаріотів у всіх зразках кишечника та підшлункової залози, найбільш поширеним типом були Proteobacteria, тоді як тип Actinobacteria мав більшу присутність у зразках гепатопанкреасу. Ці результати узгоджуються з попереднім дослідженням [36], і також було описано, що ці типи були домінуючими у молоді та дорослих креветок (Penaeus monodon) [76]. Pseudoalteromonas, що належить до типу Proteobacteria, є мікроорганізмом, що продукує травні ферменти (протеази, амілази, -галактозидази та фосфоліпази), які сприяють перетравленню поживних речовин у креветках [77–79]; також повідомлялося, що він сприяє синтезу поліненасичених жирних кислот (ПНЖК) і коротколанцюгових жирних кислот (ЖКК) [80,81]. Ruegeria, що належить до типу Proteobacteria, виробляє активність триестерази, сприяючи процесам травлення господаря, а також антибактеріальну активність проти Vibrio anguillarum [82]. Demequina, що належить до типу Actinobacteria, може продукувати -амілазу, ксиланазу та целюлазу, які беруть участь у поглинанні та утилізації вуглеводів [83–86]. Згідно з хемотаксономічними та геномними профілями, Lysinimicrobium можна вважати суб’єктивним синонімом Demequina [87] і, отже, може мати той самий внесок у активність травних ферментів і перетравлення вуглеводів. Роль прокаріотичних мікроорганізмів у травній системі креветок тісно пов’язана з прогнозами функцій у базі даних KEGG, якими були амінокислоти, вуглеводи, кофактори та метаболізм вітамінів, а також рухливість клітин. Виробництво травних ферментів і синтез незамінних жирних кислот вказують на корисну роль мікробіоти в здоров’ї та стимуляції імунітету травної системи креветок. Крім того, процеси клітинної рухливості, такі як бактеріальний хемотаксис і збирання джгутиків, можуть підтримувати прокаріотичні мікроорганізми в адаптації до травного середовища господаря [88]. Таким чином, дієти з низьким вмістом рибного борошна, доповнені 0,19% MET-MET або 0,06% MET-MET плюс пробіотик (B. amyloliquefaciens), сприятимуть сприятливій ролі прокаріотичних спільнот у травній системі креветок.
Було важко охарактеризувати чисельність еукаріотичних мікроорганізмів за допомогою секвенування гена 18S, оскільки в цьому дослідженні було виявлено велику кількість ДНК L. vannamei. Крім того, при меташтрихкодуванні ДНК фекалій зазвичай ДНК мікроеукаріот у фекаліях розщеплюється швидше, ніж ДНК хазяїна, і до або після ампліфікації необхідні додаткові етапи, такі як розщеплення або блокування ДНК хазяїна за допомогою рестриктазних ферментів або блокуючих праймерів [89]. ]. Тим не менш, результати дослідження дають уявлення про мікроеукаріотичні спільноти травної системи креветок. Тип SAR був найбільш поширеним у кишечнику креветок, яких годували дієтами з низьким вмістом рибного борошна. Aurantiochytrium був більшим у кишечнику креветок, які отримували D3, тоді як Aplanochytrium був найбільш поширеним у кишечнику креветок, яких годували D5. Крім того, Ebria була найбільш поширеною в кишечнику креветок, яких годували D1. Aurantiochytrium є продуцентом ейкозапентаєнової кислоти (EPA) [90], тоді як Aplanochytrium виробляє докозагексаєнову кислоту (DHA) [91]. Ці жирні кислоти відіграють важливу роль у сприянні росту або зміцненні імунітету водних організмів; також EPA та DHA допомагають водним організмам зменшити запальні фактори та зменшити запалення [90]. З іншого боку, Ebria має внутрішній твердий кремнієвий скелет, який може призвести до поганого травлення водними організмами [92], що може знизити продуктивність росту креветок, яких годують D1. Еукаріотичні мікроорганізми живуть як коменсали або мутуалісти в травній системі та тканинах морських безхребетних, але ймовірно, що вони походять із прибережної води, яка використовувалася для зрошення креветкового ставка, як описано раніше [93]. Однак використання дієт, які є екологічно чистими та доповненими добавками та пробіотиками, може контролювати ріст шкідливих мікроводоростей у травній системі креветок та її навколишньому середовищі [94]. Це узгоджується з результатами дослідження, які показують, що дієта з низьким вмістом рибного борошна з додаванням 0.13% DL-MET збільшила чисельність Ebria, що впливає на продуктивність і здоров’я креветок, тоді як дієти з додаванням 0.19% METMET або 0,06% MET-MET плюс 0,10% B. amyloliquefaciens сприятиме корисній ролі еукаріотичних спільнот у травній системі креветок.

Цистанче корисний для чоловіків - зміцнює імунну систему
5. Висновки
Рибне борошно можна частково замінити до 50% SBM і PBM у кормі для креветок, доповненому MET-MET та/або B. amyloliquefaciens CECT 5940 без негативного впливу на продуктивність росту. Порівняно з контрольною дієтою, креветки, яких годували дієтою зі зниженим вмістом рибного борошна з 0.19% MTE-MET і 0,06% MET-MET плюс 0,10% B. amyloliquefaciens CECT 5940, мали на 43% і 40% більшу кінцеву біомасу відповідно. Крім того, креветки, яких годували дієтою зі зниженим вмістом рибного борошна, доповненим MET-MET та/або B. amyloliquefaciens CECT 5940, мали кращу висоту епітеліальних клітин гепатопанкреасу, активність травних ферментів, транскрипційну відповідь імунозалежних генів і корисну мікробіоту для травної системи. Необхідні подальші дослідження, щоб дослідити градуйовані рівні джерел метіоніну та синергічний ефект амінокислот і пробіотиків у дієтах зі зниженим вмістом рибного борошна для вирощуваних креветок. Крім того, було б цікаво оцінити, як SBM і PBM впливають на склад жирних кислот у дієтах зі зниженим вмістом рибного борошна та якість м’язів креветок. Тим не менш, ця інформація може бути цікавою для розробки кормів з низьким вмістом рибного борошна для аквакультури без впливу на ріст і добробут водних організмів.
Список літератури
1. ФАО. Стан світового рибальства та аквакультури 2022. На шляху до блакитної трансформації; ФАО: Рим, Італія. [CrossRef]
2. Се, Ж.-Ж.; Лемме, А.; Він, Дж.-Й.; Інь, П.; Фігейредо-Сілва, К.; Лю, Ю.-Ж.; Се, С.-В.; Ніу, Дж.; Тянь, Л.-Х. Рівень рибного борошна можна успішно знизити в білих креветках (Litopenaeus vannamei), якщо додати DL-метіонін (DL-Met) або DL-метіонілDL-метіонін (Met-Met). Aquac. Nutr. 2017, 24, 1144–1152. [CrossRef]
3. Лу, Дж.; Чжан, X.; Чжоу, К.; Ченг, Ю.; Ло, Дж.; Масагундер, К.; Він, С.; Чжу, Т.; Юань, Ю.; Ши, Б.; та ін. Дієтичні добавки DL-метіоніл-DLметіоніну можуть покращити продуктивність росту за стратегій з низьким вмістом рибного борошна шляхом модуляції сигнального шляху TOR Litopenaeus vannamei. Aquac. Nutr. 2021, 27, 1921–1933. [CrossRef]
4. Чо, Дж. Х.; Кім, І. Х. Харчова цінність рибного борошна. Дж. Анім. фізіол. Анім. Nutr. 2011, 95, 685–692. [CrossRef] [PubMed]
5. Пісня, X.; Є, Х.; Джин, Ф.; Лі, Х.; Кім, Ю.-С.; Сяо, Дж.; Guo, Z. Вплив ферментованого соєвого шроту та гуанозин 50 -монофосфату на ріст, здоров’я кишечника та антистресову здатність Penaeus vannamei у дієті з низьким вмістом рибного борошна. Аквакультура 2022, 548, 737591. [CrossRef]
6. Яо, В.; Ян, П.; Чжан, X.; Сюй, X.; Чжан, К.; Лі, X.; Ленг, X. Вплив заміни дієтичного рибного борошна білком Clostridium autoethanogenum на ріст і якість м’яса тихоокеанської білої креветки (Litopenaeus vannamei). Аквакультура 2022, 549, 737770. [CrossRef]
7. Чжан, Дж.; Ян, Х.; Ян, Ю.; Чжан, К.; Є, Дж.; Sun, Y. Вплив пробіотиків рибного походження на продуктивність росту, імунну відповідь і здоров'я кишечника креветок (Litopenaeus vannamei), які годували дієтами з рибним борошном, частково заміненим соєвим. Aquac. Nutr. 2020, 26, 1255–1265. [CrossRef]
8. Джі, Р.; Ван, З.; Він, Дж.; Масагундер, К.; Сюй, В.; Мей, К.; Ai, Q. Вплив добавок DL-метіоніл-DL-метіоніну на продуктивність росту, імунну та антиоксидантну реакцію білих креветок (Litopenaeus vannamei), яких годували дієтою з низьким вмістом рибного борошна. Aquac. Rep. 2021, 21, 100785. [CrossRef]
9. Чакладер, Р.; Сіддік, М.А.Б.; Фотедар, Р. Повна заміна рибного борошна борошном із субпродуктів птиці вплинула на ріст, якість м’язів, гістологічну структуру, антиоксидантну здатність та імунну відповідь неповнолітніх Barramundi, Lates calcarifer. PLoS ONE 2020, 15, e0242079. [CrossRef]
10. Ніу, Дж.; Лемме, А.; Він, Дж.-Й.; Лі, Х.-Й.; Се, С.-В.; Лю, Ю.-Ж.; Ян, Х.-Ж.; Фігейредо-Сілва, К.; Тянь, Л.-Х. Оцінка біодоступності нового продукту Met-Met (AQUAVI®Met-Met) порівняно з dl-метіоніном (dl-Met) у білих креветках (Litopenaeus vannamei). Аквакультура 2018, 484, 322–332. [CrossRef]
11. Скіба-Кессі, С.; Гюрден, І.; Пансерат, С.; Seiliez, I. Дієтичний дисбаланс метіоніну змінює регуляцію транскрипції генів, які беруть участь у метаболізмі глюкози, ліпідів та амінокислот у печінці райдужної форелі (Oncorhynchus mykiss). Аквакультура 2016, 454, 56–65. [CrossRef]
12. Мачадо, М.; Серра, CR; Оліва-Телес, А.; Костас, Б. Метіонін і триптофан відіграють різні модуляторні ролі у вродженій імунній відповіді європейського морського окуня (Dicentrarchus labrax) і сигналізації про апоптоз — дослідження in vitro. Фронт. Immunol. 2021, 12, 660448. [CrossRef]
13. Чжоу, Ю.; Він, Дж.; Су, Н.; Масагундер, К.; Сюй, М.; Чен, Л.; Лю, К.; Є, Х.; нд, З.; Ye, C. Вплив DL-метіоніну та гідроксианалогу метіоніну (MHA-Ca) на ріст, амінокислотні профілі та експресію генів, пов’язаних із синтезом таурину та білка у звичайного коропа (Cyprinus carpio). Аквакультура 2021, 532, 735962. [CrossRef]
14. Го, Т.-Й.; Чжао, В.; Він, Дж.-Й.; Ляо, С.-Й.; Се, Ж.-Ж.; Се, С.-В.; Масагундер, К.; Лю, Ю.-Ж.; Тянь, Л.-Х.; Niu, J. Дієтичні добавки dl-метіоніл dl-метіоніну підвищили продуктивність росту, антиоксидантну здатність, вміст незамінних амінокислот і покращили різноманітність кишкової мікробіоти в тилапії Нілу (Oreochromis niloticus). бр. J. Nutr. 2020, 123, 72–83. [CrossRef]
15. Лін, Дж.; Zeng, Q.; Чжан, К.; Пісня, К.; Лу, К.; Ван, Л.; Rahimnejad, S. Вплив добавки Bacillus subtilis у дієти на основі соєвого шроту на продуктивність росту, засвоюваність дієти та здоров’я кишечника жаби-бика Lithobates catesbeianus. Aquac. Rep. 2020, 16, 100273. [CrossRef]
16. Тао, X.; Він, Дж.; Лу, Дж.; Чень, З.; Джин, М.; Цзяо, Л.; Масагундер, К.; Лю, В.; Zhou, Q. Вплив Bacillus subtilis DSM 32315 (Gutcare®) на продуктивність росту, антиоксидантний статус, імунні здібності та функцію кишечника для неповнолітніх Litopenaeus vannamei, яких годували дієтами з високим/низьким вмістом рибного борошна. Aquac. Rep. 2022, 26, 101282. [CrossRef]
17. Де Олівейра, MJK; Сакомура Н.К.; Доригам, JCDP; Дораналлі, К.; Соарес, Л.; Viana, G. Bacillus amyloliquefaciens CECT 5940 окремо або в поєднанні з антибіотиками, що стимулюють ріст, покращує продуктивність у бройлерів під впливом кишкових патогенів. птиця. Sci. 2019, 98, 4391–4400. [CrossRef]
18. Сільва, TFA; Петрілло, TR; Юніс-Агінага, Дж.; Маркуссо, П.; Клаудіано, ГДС; де Мораєс, Франція; de Moraes, JRE Вплив пробіотика Bacillus amyloliquefaciens на продуктивність росту, гематологію та кишкову морфометрію тиляпії Nile, яка вирощується в клітинах. лат. Am. Ж. Акват. рез. 2015, 43, 963–971. [CrossRef]
19. Бай, С.; Катя, К.; Юн, Х. Добавки в аквафід. Корми та практика годівлі в аквакультурі; Woodhead Publishing: Sawston, UK, 2015; С. 171–202. [CrossRef]
20. Ван, Л.; Є, Л.; Хуа, Ю.; Чжан, Г.; Лі, Ю.; Чжан, Дж.; Він, Дж.; Лю, М.; Shao, Q. Вплив dietarydl-metionyl-dl-metionine (Met-Met) на продуктивність росту, склад тіла та гематологічні параметри білих креветок (Litopenaeus vannamei), яких годували дієтами на основі рослинного білка. Aquac. рез. 2019, 50, 1718–1730. [CrossRef]
21. Аль-Деріні, Ш.; Dawood, MA; Заїд, ААА; Ель-Трас, WF; Парай, Б.А.; Ван Доан, Х.; Мохамед, Р. А. Синергічні ефекти Spirulina platensis і Bacillus amyloliquefaciens на продуктивність росту, кишкову гістоморфологію та імунну відповідь тилапії Нілу (Oreochromis niloticus). Aquac. Rep. 2020, 17, 100390. [CrossRef]
22. Сонце, Ю.; Чжан, Ю.; Лю, М.; Лі, Дж.; Лай, В.; Ген, С.; Юань, Т.; Лю, Ю.; Ді, Ю.; Чжан, В.; та ін. Вплив харчових добавок Bacillus amyloliquefaciens CECT 5940 на продуктивність росту, антиоксидантний статус, імунітет і активність травних ферментів бройлерів, яких годували раціонами кукурудза, пшениця-соя. птиця. Sci. 2022, 101, 101585. [CrossRef]
23. NRC (Національна дослідницька рада). Потреби риби та креветок у поживних речовинах; National Academic Press: Вашингтон, округ Колумбія, США, 2011. [CrossRef]
24. Го, Дж.; Девіс, Р.; Старкі, К.; Davis, DA Ефективність різних матеріалів з покриттям для запобігання вимиванню поживних речовин для тихоокеанських білих креветок Litopenaeus vannamei комерційних раціонів. J. World Aquac. Соц. 2020, 52, 195–203. [CrossRef]
25. Міжнародне епізоотичне бюро; Комісія зі стандартів охорони здоров'я водних тварин. Інструкція з діагностичних тестів для водних тварин. Міжнародне епізоотійне бюро. 2022. Доступно в Інтернеті: https://www.woah.org/en/what-we-do/standards/codes-andmanuals/aquatic-manual-online-access/ (дата доступу: 1 вересня 2022 р.).
26. Мартінес-Порчас, М.; Езкерра-Брауер, М.; Мендоса-Кано, Ф.; Гігера, JEC; Варгас-Альборес, Ф.; Мартінез-Кордова, Л. Р. Вплив додавання гетеротрофних і фотоавтотрофних біофлок на реакцію виробництва, фізіологічний стан і якість білоногих креветок Litopenaeus vannamei після вилову. Aquac. Rep. 2020, 16, 100257. [CrossRef]
27. Пенья-Родрігес, А.; Елізондо-Гонсалес, Р.; Ньєто-Лопес, М.Г.; Ріке-Марі, Д.; Круз-Суарес, Л. Е. Практичні дієти для сталого виробництва коричневих креветок, Farfantepenaeus californiensis, молоді в присутності зеленої макроводорості Ulva clathrata як природної їжі. J. Appl. Phycol. 2017, 29, 413–421. [CrossRef]
28. П'єррі, В.; Вальтер-Северіно, Д.; Гулар-Де-Олівейра, К.; Manoel-Do-Espírito-Santo, C.; Nascimento-Vieira, F.; Quadros-Seiffert, W. Вирощування морських креветок у системі технології biofloc (BFT) за різної лужності води. Браз. J. Biol. 2015, 75, 558–564. [CrossRef] [PubMed]
29. Гонсалес-Галавіз, молодший; Касільяс-Ернандес, Р.; Флорес-Перес, MB; Ларес-Вілла, Ф.; Боркес-Лопес, Р.А.; Gil-Núñez, JC Вплив генотипу та джерела білка на продуктивність тихоокеанської білої креветки (Litopenaeus vannamei). італ. Дж. Анім. Sci. 2020, 19, 289–294. [CrossRef]
30. Белл, Т.А.; Lightner, DV A Handbook of Normal Penaeid Shrimp Histology; Продовольча та сільськогосподарська організація ООН: Рим, Італія, 1988 р.
31. Касільяс-Ернандес, Р.; Аревало-Сайнс, KJ; Gonzalez-Galaviz, JR; Родрігес-Харамільо, MDC; Боркес-Лопес, Р.А.; Гіл Нуньєс, JC; Флорес-Перес, MB; Ларес-Вілла, Ф.; Ibarra-Gámez, JC; Барріос, РММ Вплив високої концентрації вуглекислого газу на продуктивність і гістологію тканин креветок Litopenaeus vannamei. Aquac. рез. 2021, 52, 3991–3996. [CrossRef]
32. Сяо, З.; Штормс, Р.; Цанг, А. Кількісний крохмаль-йодний метод для вимірювання активності альфа-амілази та глюкоамілази. анальний біохім. 2006, 351, 146–148. [CrossRef]
33. Бредфорд, М. М. Швидкий і чутливий метод кількісного визначення мікрограмів білка з використанням принципу зв’язування білка з барвником. анальний біохім. 1976, 72, 248–254. [CrossRef]
34. Чжан С.-П.; Лі, Ж.-Ф.; Ву, X.-C.; Zhong, W.-J.; Сіань, Ж.-А.; Ляо, С.-А.; Мяо, Ю.-Т.; Ван, А.-Л. Вплив різного рівня ліпідів у їжі на ріст, виживання та експресію імунозалежних генів у тихоокеанських білих креветок Litopenaeus vannamei. Риба Молюски. Immunol. 2013, 34, 1131–1138. [CrossRef]
35. Аная, Л.Р.; Касільяс-Ернандес, Р.; Флорес-Перес, MB; Ларес-Вілла, Ф.; Ларес-Хіменес, Л.Ф.; Луна-Неварез, П.; Gonzalez-Galaviz, JR Вплив генетичної лінії, джерела білка та рівня білка на ріст, виживання та імунну експресію генів Litopenaeus vannamei. J. World Aquac. Соц. 2020, 51, 1161–1174. [CrossRef]
36. Касільяс-Ернандес, Р.; Аревало-Сайнс, KJ; Флорес-Перес, MB; Гарсіа-Кларк, JG; Родрігес-Аная, ЛЗ; Ларес-Вілла, Ф.; БоркесЛопес, Р.А.; Гіл-Нуньєс, JC; Gonzalez-Galaviz, JR Транскрипційна відповідь імунозалежних генів у Litopenaeus vannamei, культивованих у рециркуляційних системах аквакультури з підвищеним вмістом CO2. Бюстгальтери Rev. de Zootec. 2021, 50, 20200197. [CrossRef]
37. Гусман-Віллануева, LT; Escobedo-Fregoso, C.; Барахас-Сандовал, ДР; Гомес-Гіл, Б.; Пенья-Родрігес, А.; Мартінес-Діас, С.Ф.; Бальказар, JL; Quiroz-Guzmán, E. Оцінка мікробної динаміки та експресії генів антиоксидантного ферменту після введення пробіотиків у вирощених тихоокеанських білих креветках (Litopenaeus vannamei). Аквакультура 2020, 519, 734907. [CrossRef]
38. Каллахан, BJ; Макмурді, П. Дж.; Розен, MJ; Хан, AW; Джонсон, AJA; Holmes, SP DADA2 : Висновок зразків високої роздільної здатності на основі даних ампліконів Illumina. Нац. Методи 2016, 13, 581–583. [CrossRef]
39. Лахті, Л.; Пакет Shetty, S. Microbiome R; Звільнення (3.16); Bioconductor: Бостон, Массачусетс, США, 2017. [CrossRef]
40. Langille, MGI; Заневельд, Дж.; Капорасо, Дж. Г.; Макдональд, Д.; Лицарів, Д.; Reyes, JA; Клементе, JC; Burkepile, DE; Вега Тербер, RL; Найт, Р.; та ін. Прогностичне функціональне профілювання мікробних спільнот з використанням послідовностей маркерних генів 16S рРНК. Нац. Біотехнологія. 2013, 31, 814–821. [CrossRef]
41. Корнехо-Гранадос, Ф.; Лопес-Завала, А.А.; Gallardo-Becerra, L.; Мендоза-Варгас, А.; Санчес, Ф.; Вічідо, Р.; Бріба, Л.Г.; Віана, Монтана; Сотело-Мундо, RR; Очоа-Лейва, А. Мікробіом тихоокеанської білоногої креветки показує різницю у складі бактеріального співтовариства між дикими, аквакультурними умовами та умовами спалаху AHPND/EMS. Sci. 2017, 7, 1–15. [CrossRef]
42. Façanha, FN; Олівейра-Нето, Арканзас; Фігейредо-Сілва, К.; Nunes, AJ Вплив щільності посадки креветок і градуйованих рівнів дієтичного метіоніну на продуктивність росту Litopenaeus vannamei, вирощеного в системі зеленої води. Аквакультура 2016, 463, 16–21. [CrossRef]
43. Нуньєс, AJP; Сабрі-Нето, Х.; Masagounder, K. Сирий протеїн у дієтах з низьким вмістом рибної муки для молоді Litopenaeus vannamei можна зменшити за допомогою добре збалансованого додавання незамінних амінокислот. J. World Aquac. Соц. 2019, 50, 1093–1107. [CrossRef]
44. Лларіо, Ф.; Фалько, С.; Себастья-Фраске, М.-Т.; Ескріва, Дж.; Роділла, М.; Poersch, LH Роль Bacillus amyloliquefaciens на Litopenaeus vannamei під час дозрівання системи Biofloc. J. Mar. Sci. інж. 2019, 7, 228. [CrossRef]
45. Лларіо, Ф.; Романо, Луїзіана; Роділла, М.; Sebastiá-Frasquet, MT; Poersch, LH Застосування Bacillus amyloliquefaciens як пробіотика для Litopenaeus vannamei (Boone, 1931), культивованого в системі біофлоку. Іран. Дж. Фіш. Sci. 2020, 19, 904–920.
46. Гаріб-Насері, К.; Доригам, JCDP; Дораналлі, К.; Херавій, С.; Свік, Р.А.; Чокт, М.; Ву, С.-Б. Модуляції генів, пов’язаних з цілісністю кишківника, апоптозом та імунітетом, лежать в основі сприятливого впливу Bacillus amyloliquefaciens CECT 5940 на бройлерів, яких годували раціонами з різними рівнями білка в моделі зараження некротичним ентеритом. Дж. Анім. Sci. Біотехнологія. 2020, 11, 104. [CrossRef]
47. Ajogwu, TMC; Еквелор, CC; Mbah, AN; Мадукве, EJ; Еквелор, І.А. Скринінг видів бацил, що продукують метіонін, із нігерійських ферментованих харчових приправ та вплив деяких культуральних параметрів на накопичення метіоніну. Am. J. Food Nutr. 2020, 9, 16–22. [CrossRef]
48. Ю, М.-Ч.; Лі, З.-Ж.; Лін, Х.-З.; Вен, Г.-Л.; Ma, S. Вплив дієтичних Bacillus і лікарських трав на ріст, активність травних ферментів і біохімічні параметри сироватки креветки Litopenaeus vannamei. Aquac. Міжн. 2008, 16, 471–480. [CrossRef]
49. Їлмаз, С.; Ергюн, С.; Їгіт, М.; Çelik, E. Вплив комбінації дієтичного Bacillus subtilis і транс-коричної кислоти на вроджені імунні реакції та стійкість райдужної форелі, Oncorhynchus mykiss до Yersinia ruckeri. Aquac. рез. 2020, 51, 441–454. [CrossRef]
50. Заре, Р.; Кенарі А.А.; Садаті, М. Й. Вплив харчової оцтової кислоти, білка (пробіотика) та їх комбінації на продуктивність росту, мікробіоту кишечника, травні ферменти, імунологічні параметри та склад жирних кислот у сибірського осетра (Acipenser baerii, Brandt, 1869). Aquac. Міжн. 2021, 29, 891–910. [CrossRef]
51. Роджан, П.; Сойсуван, К.; Thongprajukaew, K.; Theapparat, Y.; Khongthong, S.; Jeenkeawpieam, J.; Salaeharae, T. Вплив органічних кислот або пробіотиків окремо або в комбінації на продуктивність росту, засвоюваність поживних речовин, активність ферментів, кишкову морфологію та мікрофлору кишечника у курчат-бройлерів. Дж. Анім. фізіол. Анім. Nutr. 2018, 102, e931–e940. [CrossRef] [PubMed]
52. Гонг, Ю.; Чу, Дж.; Кірбі, Р.; Шин, С.; Чієн, А. Вплив заміни білка рибного борошна сумішшю борошна із субпродуктів птиці та ферментованого соєвого борошна на продуктивність росту та поживний склад тканин азіатського морського окуня (Lates calcarifer). Aquac. рез. 2021, 52, 4105–4115. [CrossRef]
53. Буррі, Л.; Берге, К.; Чумкам, С.; Джінтасатапорн, О. Вплив різних рівнів включення криля в корм на ріст і морфологію гепатопанкреасу Litopenaeus vannamei. Aquac. рез. 2020, 51, 4819–4823. [CrossRef]
54. Мурашіта, К.; Мацунарі, Х.; Фукада, Х.; Сузукі, Н.; Фуруїта, Х.; Оку, Х.; Rønnestad, I.; Yoshinaga, H.; Ямамото, Т. Вплив рослинної дієти з низьким вмістом рибного борошна на фізіологію травлення жовтохвоста Seriola quinqueradiata. Аквакультура 2019, 506, 168–180. [CrossRef]
55. Рахімнеджад, С.; Юань, X.; Ван, Л.; Лу, К.; Пісня, К.; Zhang, C. Хітоолігосахаридні добавки в дієти з низьким вмістом риби для тихоокеанських білих креветок (Litopenaeus vannamei): вплив на ріст, вроджений імунітет, гістологію кишечника та експресію імунозалежних генів. Риба Молюски. Immunol. 2018, 80, 405–415. [CrossRef]
56. Пенья-Родрігес, А.; Pelletier-Morreeuw, Z.; Гарсіа-Лухан, Дж.; Родрігес-Харамільо, MDC; Гусман-Віллануева, Л.; Escobedo regoso, C.; Товар-Рамірес, Д.; Reyes, AG Оцінка сирого екстракту побічного продукту Agave lechuguilla як кормової добавки для молоді креветок Litopenaeus vannamei. Aquac. рез. 2019, 51, 1336–1345. [CrossRef]
57. Рей, GW; Лян, Д.; Ян, К.; Тан, Б.; Донг, X.; Чі, С.; Лю, Х.; Чжан, С.; Rimei, L. Вплив заміни рибного борошна дієтичним соєвим білковим концентратом (SPC) на ріст, біохімічні показники сироватки та антиоксидантні функції для молодих креветок Litopenaeus vannamei. Аквакультура 2020, 516, 734630. [CrossRef]
58. Амбасанкар, К.; Даял, Дж.С.; Васагам, К.К.; Сіварамакрішнан, Т.; Сандіп, КП; Паніграхі, А.; Ананда Раджа, Р.; Буррі, Л.; Віджаян, К. К. Ріст, склад жирних кислот, експресія генів, пов’язаних з імунною системою, гістологічні та гематологічні показники Penaeus vannamei, яких годували сортованими рівнями борошна з антарктичного криля у двох різних концентраціях рибного борошна. Аквакультура 2022, 553, 738069. [CrossRef]
59. Нур, З.; Нур, М.; Хан, С.А.; Юнас, В.; Уалієва Д.; Хасан, З.; Yousafzai, AM. Дієтичні добавки метіоніну покращують продуктивність росту, вроджений імунітет, травні ферменти та антиоксидантну активність роху (Labeo rohita). Фізіологія риб. біохім. 2021, 47, 451–464. [CrossRef]
60 Юнь Х.; Шахкар, Е.; Хамідоглі, А.; Лі, С.; Вон, С.; Bai, SC Оцінка дієтичного соєвого шроту як замінника рибного борошна для молоді білоногих креветок Litopenaeus vannamei, вирощених у системі biofloc. Міжн. Aquat. рез. 2017, 9, 11–24. [CrossRef]
61 Ху, X.; Ян, Х.-Л.; Ян, Ю.-Й.; Чжан, C.-X.; Є, Ж.-Д.; Лу, К.-Л.; Ху, Л.-Х.; Чжан, Ж.-Ж.; Руан, Л.; Сун, Ю.-З. Вплив фруктоолігосахариду на ріст, імунітет і мікробіоту кишечника креветок (Litopenaeus vannamei), які годували дієтами з рибним борошном, частково заміненим соєвим. Aquac. Nutr. 2019, 25, 194–204. [CrossRef]
62. Мамауаг, REP; Гао, Дж.; Нгуєн, Б.Т.; Рагаза, Я.; Кошіо, С.; Ісікава, М.; Yokoyama, S. Добавки dl-метіоніну та дипептиду метіоніну в дієти є ефективними для розвитку та росту личинок та молоді Червоного морського ляща, Pagrus major. J. World Aquac. Соц. 2012, 43, 362–374. [CrossRef]
63. Ву, П.; Тан, Л.; Цзян, В.; Ху, К.; Лю, Ю.; Цзян, Дж.; Куанг, С.; Тан, В.; Чжан, Ю.; Чжоу, X.; та ін. Взаємозв'язок між дієтичним метіоніном і ростом, травленням, всмоктуванням і антиоксидантним статусом у кишкових і гепатопанкреатичних тканинах недорослого білого амура (Ctenopharyngodon idella). Дж. Анім. Sci. Біотехнологія. 2017, 8, 1–14. [CrossRef]
64. Encarnação, P. Функціональні кормові добавки в кормах для аквакультури. У рецептурі Aquafeed; Academic Press: Cambridge, MA, USA, 2016; С. 217–237. [CrossRef]
65. Се, С.; Вей, Д.; Інь, П.; Чжен, Л.; Го, Т.; Лю, Ю.; Тянь, Л.; Niu, J. Дієтична заміна рибного борошна з порушенням синтезу білка та імунної відповіді молоді тихоокеанської білої креветки Litopenaeus vannamei при низькій солоності. комп. біохім. фізіол. Частина B Біохім. мол. Biol. 2018, 228, 26–33. [CrossRef]
66. Айіку, С.; Шен, Дж.; Тан, Б.-П.; Донг, X.-H.; Лю, Х.-Й. Вплив зменшення дієтичного рибного борошна з дріжджовими добавками на ріст Litopenaeus vannamei, імунну відповідь і стійкість до захворювань проти Vibrio harveyi. мікробіол. рез. 2020, 239, 126554. [CrossRef]