Визначення циркадного порушення при нейродегенеративних розладах
Aug 29, 2023
Нейродегенеративні захворювання охоплюють велику групу станів, які клінічно та патологічно різноманітні, але пов’язані спільною патологією неправильно згорнутих білків. Накопичення нерозчинних агрегатів супроводжується прогресуючою втратою вразливих нейронів. У деяких пацієнтів симптоми зосереджені на моториці (атаксія), тоді як у інших спостерігаються когнітивні та психіатричні симптоми (деменція).
Нейродегенеративні захворювання - це група поширених захворювань нервової системи, таких як хвороба Альцгеймера, хвороба Паркінсона, хвороба Хантінгтона тощо. Виникнення та розвиток цих захворювань тісно пов'язані з імунітетом.
Перш за все, імунітет є важливою запорукою здоров'я організму. Імунна система захищає організм від інфекції, розпізнаючи та атакуючи патогени, які проникають в організм. Здоров’я імунної системи тісно пов’язане з нормальною роботою різних систем організму.
По-друге, виникнення і розвиток нейродегенеративних захворювань тісно пов'язані з імунітетом. Дослідження показали, що імунітет може впливати на імунну відповідь і здатність нейронів до відновлення, що має важливий вплив на здоров’я нервової системи. Зниження імунітету може зробити нервову систему вразливою до патогенів і аутоімунних атак, що може призвести до нейродегенеративних захворювань.
Нарешті, є кроки, які ми можемо вжити, щоб підвищити імунітет і запобігти та затримати початок і прогресування нейродегенеративних захворювань. Наприклад: підтримувати здоровий спосіб життя, наприклад правильні фізичні вправи, збалансоване харчування, відмова від куріння та алкоголю; активно захищати від патогенів, наприклад, своєчасна вакцинація, часте миття рук тощо; зміцнювати тренування імунітету, наприклад розумні вітамінні добавки, їсти більше фруктів і овочів, підтримувати настрій Шу Чанг і так далі.
Підсумовуючи, нейродегенеративні захворювання тісно пов’язані з імунітетом. Активне підвищення імунітету може ефективно запобігти та затримати виникнення та розвиток нейродегенеративних захворювань. Я вірю, що завдяки нашим спільним зусиллям ми зможемо відкрити світле майбутнє для неврологічного здоров’я. Видно, що нам потрібно вдосконалювати пам'ять. Цистанхе може значно покращити пам'ять, оскільки м'ясна паста є традиційним китайським лікувальним матеріалом з багатьма унікальними ефектами, одним із яких є покращення пам'яті. Ефективність м’ясного фаршу пов’язана з різноманітністю активних інгредієнтів, які містяться в ньому, включаючи карбонову кислоту, полісахариди, флавоноїди тощо. Ці інгредієнти можуть сприяти здоров’ю мозку через різні канали.

Клацніть «Знай, як покращити короткочасну пам’ять».
Серед загальних симптомів нейродегенеративних захворювань є порушення циклу сну/неспання, яке відбувається на ранній стадії розвитку захворювання та може бути фактором ризику розвитку захворювання. У багатьох випадках порушення синхронізації сну та інших ритмічних фізіологічних маркерів негайно підвищує ймовірність порушення системи циркадного часу, викликаного нейродегенерацією. Метою цього огляду є узагальнення доказів, що підтверджують гіпотезу про те, що порушення циркадного календаря є основним симптомом нейродегенеративних захворювань, включаючи хворобу Альцгеймера, Хантінгтона та Паркінсона, а також обговорення останніх досягнень у цій галузі.
В Огляді обговорюються докази того, що нейродегенеративні процеси можуть порушити структуру та функцію циркадної системи, і описуються втручання на основі циркадних процесів, а також медикаментозне лікування, яке може покращити широкий спектр симптомів, пов’язаних із нейродегенеративними розладами. Він також визначає ключові прогалини в наших знаннях.
вступ
Термін «нейродегенеративне захворювання» (НДЗ) охоплює велику групу станів, які клінічно та патологічно різноманітні. Тим не менш, існує спільна біологія, оскільки ці захворювання характеризуються накопиченням неправильно згорнутих білків у нерозчинні агрегати, що супроводжується прогресуючою втратою нейронів. Ці білкові агрегати утворюються мутантним хантингтином при хворобі Хантінгтона (HD); амілоїд- і тау при хворобі Альцгеймера (БА); і неправильно згорнутий -синуклеїн при хворобі Паркінсона (ХП) та пов'язаних з нею розладах (1). Ці хвороби мають спільні елементи через токсичну природу білкових агрегатів. Є також докази того, що неправильно згорнуті білки можуть передаватися від клітини до клітини з агрегатами, які служать хімічною матрицею для їх утворення в клітинах-реципієнтах (2).
Поєднання вибіркової вразливості та поширення може пояснити, як NDD впливають на різні мережі клітин.
Серед спільних симптомів NDD є порушення циклу сну/неспання, яке відбувається на ранніх стадіях прогресування захворювання. У багатьох випадках синхронізація сну та ритмічні фізіологічні маркери порушуються, що підвищує ймовірність порушення системи циркадного часу, спричиненого NDD. Циркадний годинник – це часова програма, яка генерує 24-годинну структуру біологічних процесів від експресії генів до поведінки. Циркадні годинники є автономними, виробляючи ритми навіть за відсутності щоденних сигналів навколишнього середовища, і широко поширені в мозку та тілі. Система циркадного часу ссавців включає центральний годинник у супрахіазматичному ядрі (SCN), який отримує світлову інформацію через спеціалізований шлях, а також інформацію про інші відповідні сигнали навколишнього середовища, як-от час їжі. SCN спілкується з рештою мозку через кілька шляхів, включаючи центри збудження, вегетативну нервову систему та вісь гіпоталамус-гіпофіз-наднирники (HPA). Враховуючи це потужне поєднання вихідних шляхів, центральний годинник може регулювати ритми в усьому тілі, і більшість тканин мають клітинно-автономні молекулярні годинники. Результатом є широка часова структура, яка впливає на всі біологічні системи. Одним із центральних принципів циркадного поля є те, що ця тимчасова структура має важливе значення для нашого здоров’я (3, 4), і її порушення має відчутні витрати у всьому нашому тілі.
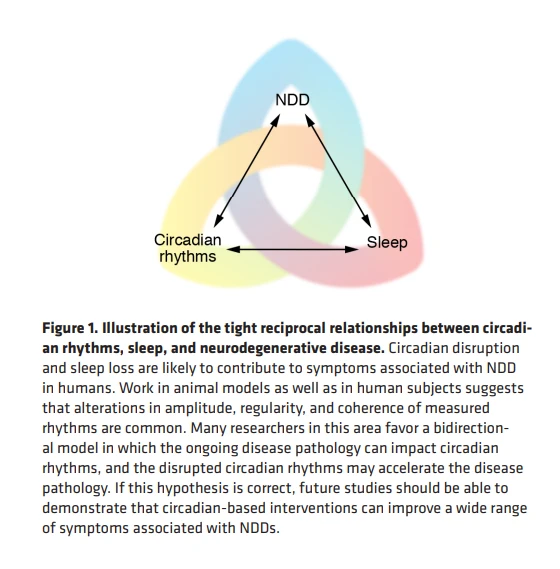
На клітинному та молекулярному рівнях молекулярний годинниковий механізм керує ритмічною транскрипцією кількох генів (4). Цей циркадний годинниковий механізм керує часовою регуляцією ключових біологічних процесів, пов’язаних з переробкою білків, які можуть впливати на утворення агрегатів (5), а також на передачу неправильно згорнутих білків (6). Важливо, що очищення неправильно згорнутих білків здійснюється сном через регуляцію глімфатичного потоку (7). З цих причин багато дослідників (8, 9) віддають перевагу двонаправленій моделі, в якій поточна патологія захворювання може впливати на циркадні ритми, а порушені циркадні ритми можуть прискорити патологію (рис. 1).
Термін «порушення циркадного періоду» широко використовується в контексті NDD, але дослідники не мають чіткого визначення (10). Хоча існує кілька ключових ритмічних параметрів, керованих циркадною системою (наприклад, амплітуда, фаза, період), генетики зосереджуються в основному на ендогенній тривалості циклу, і ми маємо детальне розуміння основних молекулярних механізмів. Виміряна в постійних умовах довжина циклу, створена системою циркадного часу, є точною та піддається кількісному вимірюванню, тобто є чудовим результатом для дослідження за допомогою мутаційних та зворотних генетичних стратегій (11). За найвужчим визначенням ми могли б обмежити наше обговорення пацієнтів із порушеннями циркадного ритму та моделей на тваринах, включаючи зменшення амплітуди, фрагментацію (втрату нормально консолідованих станів сну/неспання) та збільшення мінливості добових ритмів від циклу до циклу. На жаль, ці симптоми мають кілька можливих альтернативних пояснень. Наприклад, зменшення амплітуди ритму може бути спричинене дефектами багатьох процесів, що відбуваються нижче за системою циркадного часу. Це викликає особливе занепокоєння у випадку HD та PD, при яких ключовим симптомом є порушення моторної активності через кола базальних гангліїв. Хоча ми повинні бути обережними в наших інтерпретаціях, збої в часових моделях поведінки або фізіологічних ритмах підвищують, як мінімум, можливість дефіциту в системі циркадного часу.
Дефіцит системи циркадного часу, зумовлений NDD
Класично система циркадного часу складається з вхідного шляху світла; центральний годинник, розташований у SCN; і кілька вихідних шляхів (рис. 2). Молекулярні циркадні годинники широко поширені та локально контролюють часовий патерн транскрипції. Може бути корисним розглянути можливу дисфункцію, спричинену NDD, у кожному з цих компонентів.
Дефіцит виявлення циркадного світла, викликаний NDD
Добовий цикл світло/темрява (LD) є потужним регулятором поведінки як через прямий вплив світла, так і через синхронізацію ендогенного циркадного годинника (21). Світло виявляють власне фоторецептивні гангліозні клітини сітківки (ipRGC), які використовують меланопсин як фотопігмент (22, 23). IPRGC також можуть реагувати на сигнали, керовані паличками та колбочками (24). ipRGC інтегрують цю світлову інформацію (25) і надсилають пряму проекцію на центральний циркадний годинник, де цей сигнал синхронізує циркадні коливання. IPRGC також частково лежать в основі прямого впливу світла на настрій і пізнання (26, 27).
Є докази того, що пацієнти з ХП та БА мають менше ipRGC зі зниженою дендритною складністю (28, 29). Внесок паличок, колбочок та ipRGC у світловий рефлекс зіниці можна оцінити за допомогою пупілометрії. Зокрема, реакція зіниці після освітлення (PIPR) є надійним показником функції ipRGC і порушується у пацієнтів з ХП та АД (30–32). Пацієнти з ризиком AD мають значну варіабельність PIPR порівняно зі здоровими контрольними групами, що свідчить про те, що цей світловий рефлекс може бути прогностичним (32, 33). Хоча потрібна додаткова робота, цей відносно простий аналіз може стати важливим клінічним заходом для порушення вхідного шляху світла до циркадної системи.

У HD мишачих моделях дегенерація ipRGCs відбувається на початку прогресування захворювання (34, 35). Є кілька способів перевірити, як світло впливає на циркадіанну систему. Можливо, найбільш остаточним показником є величина фазових зсувів, викликаних світлом, коли мишей тримають у постійній темряві. Важливо, що моделі HD показують значне зменшення величини індукованих світлом фазових затримок, а також довший час для повторного залучення до зсуву в циклі LD (35–37). У сукупності переконливі доклінічні дані свідчать про те, що надходження світла в циркадіанну систему скомпрометовано при HD. Ситуація в PD і AD менш ясна. Поведінкові дані неоднозначні, причому деякі групи не виявили впливу на шлях надходження світла в добре встановлених моделях мишей для PD (38) або AD (39). З іншого боку, лінія нокауту аполіпопротеїну E4 (APOE4-KO), модель AD, продемонструвала значне зменшення величини індукованих світлом фазових зрушень (40), а також підвищення активності під час світла фаза циклу LD (39, 41). Хоча можливі й інші механізми, зменшення здатності світла скидати циркадний годинник може пояснити зменшення амплітуди ритму в умовах LD, а також збільшення варіабельності від циклу до циклу.

Дефіцит SCN, викликаний NDD
SCN гіпоталамуса містить так звану основну коливальну мережу, необхідну для координації циркадних ритмів у всьому тілі. Кілька досліджень розглядали посмертні структурні зміни в SCN при NDD (42–47). Ці дослідження показують зменшення кількості та розміру клітин, а також зменшення кількості клітин, що експресують вазоактивний інтестинальний пептид (VIP-експресія) та аргінін-вазопресин (AVP-експресія) у SCN. У кількох особливо вражаючих дослідженнях вдалося виміряти добові ритми суб’єктів з AD, а потім посмертно дослідити SCN пацієнтів. Перше дослідження показало, що специфічна втрата нейротензинових нейронів SCN була пов’язана з втратою активності та амплітуди температури у пацієнтів з AD (48). Робота лабораторії Saper (49) виявила, що амплітуда циркадного ритму в осіб з AD корелювала з кількістю нейронів SCN, що експресують VIP. AD був додатково пов’язаний із затримкою циркадної фази порівняно з когнітивно здоровими суб’єктами. Разом ці дані узгоджуються з можливістю того, що пошкодження самої SCN лежить в основі циркадних порушень при NDD, принаймні на пізніх стадіях захворювання.
Є деякі докази анатомічних змін SCN у мишачих моделях NDD. Наприклад, були повідомлення про зниження експресії VIP у SCN у моделях HD (50, 51). Крім того, у HD-моделі спостерігається зменшення визначеного Nissl розміру чоловічого, але не жіночого SCN (51). Можливо, найяскравіший випадок патології SCN походить від роботи в моделі APOE4-KO (40). Автори знайшли докази амілоїдозу та відкладення тау-тау, а також мітохондріального та синаптичного погіршення у мутантній SCN. Тауопатія також спостерігалася в SCN старих мишей Tg4510 (модель AD) (52), підкреслюючи важливість віку як змінної. Ці дефіцити в мишачих моделях здебільшого спостерігаються у молодих тварин і тварин середнього віку (12 місяців або менше), тоді як дані про людину є посмертними. Цілком може бути, що дефіцит у мишей стає більш вираженим до кінця їхнього життя.
Характерною властивістю нейронів SCN є те, що вони генерують циркадний ритм нейронної активності з більшою спонтанною активністю протягом дня, ніж протягом ночі. Цей ритм нейронної активності має вирішальне значення для синхронності клітин у ланцюзі SCN, а також здатності цього ядра керувати виходами по всьому тілу. На ці ритми електричної активності SCN впливає вік, і вони вже демонструють зменшення амплітуди та збільшення варіабельності до середнього віку (53). Ритми нейронної активності SCN порушуються на ранніх стадіях NDD і супроводжуються втратою нормальної щоденної варіації мембранного потенціалу спокою в нейронах SCN (36, 38, 51, 54). Таким чином, є докази патофізіології на рівні SCN у мишачих моделях NDD.
NDD-керовані зміни в SCN-керованих результатах
За даними актиграфії, у багатьох пацієнтів з NDD спостерігатиметься підвищена фрагментація їхнього циклу сну/неспання, що вимірюється за збільшенням збудження вночі та збільшенням сну вдень (8, 9, 55, 56). Схема, за допомогою якої SCN контролює рухову активність, недостатньо вивчена, але, безумовно, проходить через дофамінергічну регуляцію ланцюга базальних гангліїв. Клітинні популяції в цьому регіоні є вразливими до патології, спричиненої хворобою хвороби та гепатиту. Розуміння того, як NDDs впливають на циркадіанну регуляцію областей моторного контролю, є важливою областю для майбутніх досліджень.
Мелатонін. Одним із найкраще вивчених циркадних циклів є часовий контроль секреції мелатоніну. Ланцюги, залучені до нічного підвищення секреції мелатоніну та вегетативної функції, відносно добре визначені (57). Рецептори мелатоніну експресуються по всьому тілу (58) і мають широкий вплив на біологічні системи. Сама SCN експресує високі рівні рецепторів мелатоніну, а взаємодія між SCN і шишкоподібною залозою формує нейроендокринну петлю зворотного зв’язку (59). З клінічної точки зору початок мелатоніну в тьмяному світлі (DLMO) можна використовувати як лабораторний показник для визначення фази циркадного циклу (60). Рівні мелатоніну зазвичай вимірюють у плазмі або слині, оскільки це дозволяє часто брати проби для більш точного визначення фази.
Повідомлялося, що у пацієнтів з ГД спостерігається затримка фази секреції мелатоніну, яка уповільнюється з прогресуванням захворювання (61). Інше дослідження задокументувало зниження рівня мелатоніну у пацієнтів із передманіфестною ГХ (62) із подальшим зниженням рівня мелатоніну з прогресуванням до маніфестної ГХ. В обох групах міжсуб'єктний DLMO був більш варіабельним порівняно з контролем. Однак інше дослідження носіїв алелю HD не виявило жодних змін у DLMO, навіть серед осіб із частою нічною пробудженням (63). Серед пацієнтів із ХП є докази зменшення амплітуди секреції мелатоніну, але неоднозначна підтримка різниці у фазі (64–66). Фактором ускладнення є те, що дофамінергічні препарати, які використовуються для лікування хвороби Паркінсона, також впливають на секрецію мелатоніну (67). Ранні дослідження пацієнтів з AD виявили докази зниження рівня мелатоніну (65–70). Нещодавні дослідження показали, що DLMO затримується зі зниженою амплітудою у пацієнтів з легкими когнітивними порушеннями (71). З огляду на те, що вимірювання можна проводити на основі зразків слини, дивує відносна відсутність даних про час секреції мелатоніну у пацієнтів із NDD. Для пацієнтів із NDD було б цікаво поглянути на внутрішньосуб’єктну варіабельність DLMO, оскільки дані активності свідчать про те, що щоденна варіабельність, ймовірно, буде вищою, ніж у контрольній групі. Наш брак знань про вплив NDD на ритмічність мелатоніну поширюється на мишачі моделі, оскільки більшість із них знаходяться на фоні C57 і, таким чином, не виробляють ритмічний мелатонін.
Основна температура тіла. Внутрішня температура тіла (CBT) є ще одним загальноприйнятим маркером циркадної ритмічності, яка у людей висока вдень і низька вночі. Циркадні ритми при КПТ не залежать від локомоторної активності, але залежать від інтактного SCN (72–74). Проекції рухаються від SCN до субпаравентрикулярної зони, і ці нейрони необхідні для керування циркадними ритмами КПТ (75). Нові технології дозволяють безперервно вимірювати КПТ за допомогою бездротових капсул і, можливо, навіть переносних пристроїв, які мають полегшити вимірювання в популяціях пацієнтів.
Повідомлялося, що пацієнти з передсимптомною ГХ мали підвищений денний ТГС (76), але ритми не вимірювалися. При ХП амплітуда ритму КПТ була знижена в підгрупі пацієнтів із розладом поведінки уві сні (RBD) та деменцією з тільцями Леві (77). Зв’язок між RBD і зниженою амплітудою ритмів КПТ було виявлено в інших роботах (78, 79). Ранні дослідження при AD не виявили різниці в амплітуді ритму КПТ, але фаза була відстроченою у пацієнтів з AD (80). Підгрупа пацієнтів із нічним збудженням, відома як «поведінка на заході сонця», фактично показала більш амплітудний ритм, який також був із затримкою фази (81). В одному важливому дослідженні КПТ вимірювали у людей похилого віку, згрупованих у здорове старіння або ймовірний AD, і молодих суб’єктів (82). Автори виявили зниження амплітуди циркадних ритмів при ТГС в обох вікових групах порівняно з молоддю. Затримку фази спостерігали у ймовірних пацієнтів з AD, але не в контрольній групі відповідного віку. Загалом дані свідчать про те, що деякі, але не всі, пацієнти з NDD демонструють або зменшення амплітуди, або фазову затримку цих ритмів.
Гіпотезу про те, що ритми КПТ практично не змінюються на ранніх стадіях прогресування хвороби NDD і що ці ритми стають притупленими та фазовими зміщеннями на пізніх стадіях, можна легко перевірити в дослідженнях на тваринах. Наприклад, ретельні поздовжні дослідження мишачих моделей HD виявили незмінні ритми КПТ на початку прогресування захворювання, і ці ритми демонстрували знижену амплітуду та підвищену варіабельність від циклу до циклу в міру прогресування захворювання (83–85). В іншому дослідженні використовувалася телеметрія для вимірювання ритмів КПТ у молодих і середнього віку мишей з AD (3xTgAD) (86). Ритми КПТ були фазовими у молодих тварин і до середнього віку фактично демонстрували збільшення амплітуди. CBT як міра результату, керованого SCN, ймовірно, недостатньо використовується в мишачих моделях NDD.
Кортизол. Вивільнення кортизолу з кори надниркових залоз регулюється віссю HPA, і кілька рівнів цієї осі знаходяться під циркадним контролем (59, 87). Одним із найнадійніших циркадних ритмів є циркулюючий кортизол, який досягає піку безпосередньо перед пробудженням. Цей гормон максимально близький до універсального сигналу «неспання» і може підготувати тіло до майбутньої діяльності. Глюкокортикоїдні і мінералокортикоїдні рецептори мають широке поширення. Цікаво, що глюкокортикоїдні рецептори не виявлені в SCN, що свідчить про те, що щоденне збільшення концентрації кортизолу може діяти як односпрямований вихідний сигнал від SCN. Вимірювання кортизолу є рутинним, хоча переважно в сироватці крові, що ускладнює часте взяття проб. Кортизол також можна виміряти в слині, але вважається, що ранковий підйом відбувається перед пробудженням, тому частий аналіз, необхідний для визначення ритму, порушить цикл сну/неспання.
Незважаючи на ці проблеми, кілька досліджень вивчали вплив NDD на ритми кортизолу. У першому дослідженні досліджували 24-годинну секрецію кортизолу у пацієнтів із ГХ на ранній стадії, які не приймали ліки, і виявили вищу амплітуду ритмів у популяції ГХ (61). Інше дослідження виявило легке порушення або відсутність порушення ранкової секреції кортизолу у носіїв HD, що передувало появі моторних симптомів (63, 88, 89). Повідомлялося, що пізніші стани HD демонструють прогресування фази, подібне до того, що спостерігається при старінні (90), а також підвищений рівень кортизолу (91). У важливому дослідженні Гартманн і його колеги (92) безпосередньо порівнювали пацієнтів із ХП і АД із контрольною групою відповідного віку, беручи зразки за 24- години кожні 15 хвилин. Пацієнти з AD і PD мали значно вищі загальні концентрації кортизолу в плазмі. Пацієнти з ХП також демонстрували знижену амплітуду ритму секреції кортизолу, тоді як у хворих на ХД цей ритм виявився прогресуючим. Нещодавнє дослідження також виявило, що пацієнти з ХП мали значно підвищені загальні концентрації кортизолу в плазмі (93) без змін у часі появи або зміщення кортизолу. Проте у кількох пацієнтів із ХП (41%) спостерігався аритмічний профіль кортизолу. Інші дослідження виявили незмінні ритми секреції кортизолу навіть у пацієнтів, чиї патерни активності порушені (94). Загалом багато досліджень виявили докази підвищення рівня кортизолу у пацієнтів із НДЗ, але ритмічна секреція загалом не порушена.

Незважаючи на ці проблеми, кілька досліджень вивчали вплив NDD на ритми кортизолу. У першому дослідженні досліджували 24-годинну секрецію кортизолу у пацієнтів із ГХ на ранній стадії, які не приймали ліки, і виявили вищу амплітуду ритмів у популяції ГХ (61). Інше дослідження виявило легке порушення або відсутність порушення ранкової секреції кортизолу у носіїв HD, що передувало появі моторних симптомів (63, 88, 89). Повідомлялося, що пізніші стани HD демонструють прогресування фази, подібне до того, що спостерігається при старінні (90), а також підвищений рівень кортизолу (91). У важливому дослідженні Гартманн і його колеги (92) безпосередньо порівнювали пацієнтів із ХП і АД із контрольною групою відповідного віку, беручи зразки за 24- години кожні 15 хвилин. Пацієнти з AD і PD мали значно вищі загальні концентрації кортизолу в плазмі. Пацієнти з ХП також демонстрували знижену амплітуду ритму секреції кортизолу, тоді як у хворих на ХД цей ритм виявився прогресуючим. Нещодавнє дослідження також виявило, що пацієнти з ХП мали значно підвищені загальні концентрації кортизолу в плазмі (93) без змін у часі появи або зміщення кортизолу. Проте у кількох пацієнтів із ХП (41%) спостерігався аритмічний профіль кортизолу. Інші дослідження виявили незмінні ритми секреції кортизолу навіть у пацієнтів, чиї патерни активності порушені (94). Загалом багато досліджень виявили докази підвищення рівня кортизолу у пацієнтів із НДЗ, але ритмічна секреція загалом не порушена.
Дефіцит молекулярного годинникового механізму, викликаний NDD
Ритми нейронної активності в SCN керуються автономними молекулярними петлями зворотного зв’язку (96, 97). Є докази того, що старіння може впливати на експресію гена годинника в корі головного мозку людини. Детальне дослідження, проведене лабораторією МакКлунга, використовувало інформацію про час смерті, щоб вивчити часову схему експресії генів префронтальної кори головного мозку людини (17). Автори виявили, що у людей похилого віку були порушені моделі експресії PER1, тоді як експресія PER2 показала фазовий прогрес. Загалом, транскрипція багатьох генів демонструє фазові зрушення або втрату ритмічності у літній популяції. Цікаво, що підмножина генів, яка не була ритмічною в тканинах молодих людей, стала ритмічною у старшій популяції. Цей тип складності в експресії генів – це те, що ми очікуємо від пацієнтів із NDD. Інше дослідження вивчало експресію гена годинника в посмертній тканині (передній мозок і шишкоподібна залоза) і виявило докази змін у фазі ритмів гена годинника в мозку пацієнтів з AD порівняно з контрольною групою (16). Подібним чином, добовий ритмічний патерн у експресії кількох генів годинника був втрачений в шишкоподібній залозі у пацієнтів з AD (98). Нарешті, ритмічне метилювання BMAL1 порушується при AD, і це корелює з патологією тау, когнітивними порушеннями та нічним неспанням (99, 100). Ці результати підтверджують ідею про те, що ритми в експресії генів годинника порушуються у пацієнтів з AD, але в цій галузі потрібна додаткова робота.
Експресію гена годинника можна виміряти в більшості популяцій клітин, тому можна спостерігати за змінами періоду та фази периферичних тканин, спричинених хворобою. Це здається дуже багатообіцяючою стратегією, і одне дослідження досліджувало експресію гена годинника в мононуклеарних клітинах периферичної крові, взятих у пацієнтів з ранньою хворобою ХП, і виявило втрату ритму в BMAL1 і зміну експресії як PER2, так і REV-ERB (93). Щоб надати інший приклад, ритмічне метилювання BMAL1 було змінено у фібробластах пацієнтів з AD (99). Вимірювання експресії гена ритмічного годинника з периферичних тканин має кілька переваг перед посмертною тканиною. Це може мати обмеження, що принаймні в деяких тканинах фаза буде сильно залежати від циклу живлення/швидкого.
Експресія гена годинника в моделях мишей HD була вивчена досить детально. У моделі R6/2 із сильнішим впливом спостерігалося порушення ритмів PER2 та BMAL1 у SCN та смугастому тілі in vivo (101). Цікаво, що коли експресію гена годинника вимірювали за допомогою біолюмінесценції, керованої PER2-, основні ефекти спостерігалися у фазі ритмів, тоді як біолюмінесценція, виміряна в SCN, виглядала відносно незмінною (102, 103). Це спостереження про те, що ритми експресії гірші in vivo, ніж in vitro, підвищує ймовірність того, що молекулярний годинник у SCN відносно недоторканий, але сигнали екстра-SCN порушують ритм in vivo. Була також певна пов’язана робота з моделями AD. Наприклад, у APOE4 KO циркадний патерн експресії гена основного годинника в SCN був порушений (40). Існують також докази порушення ритмів експресії гена clock поза SCN у моделях AD (52, 104, 105). Загалом, дані про експресію генів на моделях мишей свідчать про те, що існує внутрішня десинхронізація між SCN і периферійними годинниками в NDD.
Можливі механізми, що лежать в основі циркадних порушень у NDD
Молекулярний годинниковий механізм, який керує циркадними коливаннями, знаходиться в усьому тілі. Нейрони та гліальні клітини експресують щоденні коливання, які забезпечують часову структуру транскрипції, клітинної біології та властивостей мережі всіх основних ЦНС, на які впливає NDD. Загальногеномний аналіз показує глобальний циркадний контроль над процесами, залученими до функціонально важливих шляхів, таких як транскрипція, модифікація та ремоделювання хроматину, метаболізм, запалення та клітинна сигналізація (рис. 3). Таким чином, намагаючись зрозуміти механізми, за допомогою яких циркадні порушення можуть прискорити симптоми та патологію НДЗ, існує кілька можливих опосередкованих шляхів (8, 9, 55, 106, 107), і коротко наведемо три особливо багатообіцяючі точки перетину циркадних ритмів і НДЗ. розглядається тут.
Протеостаз
Шляхи протеостазу контролюють біогенез, згортання, переміщення та деградацію білків. Ці шляхи причетні до NDD, патологія яких визначається агрегацією характерних білків. Поширена гіпотеза полягає в тому, що хронічна експресія неправильно згорнутих білків на ранньому етапі життя призводить до накопичення неправильно згорнутих видів і агрегатів, які перевищують протеостаз (108). Існують деякі докази циркадної регуляції систем контролю якості білка, включаючи молекулярні шаперони, убіквітин-протеасомну систему та аутофагічно-лізосомний шлях деградації в мозку. Наприклад, аналіз генної онтології транскриптів у SCN виявив збагачення генів, залучених до стабілізації та згортання білка, які ритмічно експресуються в різних типах клітин (5). Хоча відносно невивчені мережі протеостазу, ймовірно, будуть важливі для розуміння зв’язків між циркадною дисфункцією та НДЗ. У печінці є достатні докази циркадної регуляції аутофагії (109), а у фібробластах спостерігаються ритми протеасомної активності (110). Крім того, кілька молекулярних шаперонів, включаючи білки теплового шоку (Hsp70, Hsp90), є ключовими у згортанні та розгортанні білка (111). Зв’язування ДНК фактора теплового шоку 1 (HSF1) є високоритмічним (112) і керує експресією білків теплового шоку на початку активності. Існують докази того, що залежна від HSF1-регуляція відповіді на тепловий шок in vivo порушується на моделях HD-мишей (113). Використовуючи модель Drosophila HD, є докази того, що організуючий білок Hsp70/90 регулює агрегацію та токсичність мутантного гентінгтину (mHtt) (114). Експерименти з визначення ролі циркадної системи в регуляції мережі протеостазу в ЦНС видаються особливо перспективним напрямком для майбутньої роботи.
З’являється все більше доказів регуляції сну/неспання кліренсу неправильно згорнутих білків у глімфатичній системі мозку, опосередкованого астроглією об’ємного потоку міжтканинної рідини (7). Як описано вище, НДЗ порушують сон, і логічно припустити, що скорочення сну призводить до зниження виведення відходів мозку. Активність глімфатичної системи висока під час сну і низька під час неспання (115). Існують добові ритми рівнів амілоїду (A) та позаклітинних рівнів тау (116). Аргумент про те, що ці ритми обумовлені сном, походить від спостережень, що анестезія може чітко імітувати вплив сну (117), тоді як депривація сну збільшує відкладення бляшок А, а також патологію тау (118, 119). Є також докази того, що порушення сну збільшує виробництво A (120). Отже, наявні дані свідчать про те, що сон може регулювати як утворення, так і видалення A.
Хоча сон може бути прямим рушієм, є вагомі підстави підозрювати, що циркадна система також задіяна. Наприклад, делеція Bmal1 спричиняє серйозну циркадіанну фрагментацію, значно притупляє ритми А та збільшує відкладення амілоїдних бляшок у моделі трансгенної миші з AD (121). Крім того, дані свідчать про те, що глімфатичний приплив і кліренс демонструють циркадні ритми, які досягають піку під час середньої фази спокою мишей. Важливо, що втрата водного каналу аквапорину -4 (AQP4), який локалізується на кінцівках судин астроцитів, усуває різницю між днем і ніччю як у глімфатичному припливі, так і в дренажі до лімфатичних вузлів (122). Нарешті, циркадна система регулює нервову активність у багатьох областях ЦНС, і ці ритми можуть впливати на відкладення бляшок.
Передача неправильно згорнутих білків
Багато патологічних білків, пов’язаних із NDD, піддаються передачі від клітини до клітини через незрозумілі механізми. Ін’єкція та поширення синтетичних А-фібрил або -синуклеїну через анатомічно визначені ланцюги припускають, що відбувається синаптична передача неправильно згорнутих білків (2). Циркадна система регулює нервову активність, а також синаптичну передачу, тому порушення циркадної системи може змінити поширення неправильно згорнутих білків через цей механізм. Остання робота підкреслила взаємозв’язок між циркадними ритмами, сном і синаптичною передачею в передньому мозку мишей (6, 123). У цих дослідженнях автори досліджували транскрипційну, трансляційну та посттрансляційну регуляцію молекул, які беруть участь у синаптичній передачі в препаратах синаптоневросом переднього мозку протягом циклу LD. Більшість генів, задіяних у синаптичній передачі сигналів, демонстрували стійкі щоденні ритми. Ці стенограми утворили дві різкі хвилі, з транскриптами, що передують світанку (сплеск сну), пов’язаний з метаболізмом, і ті, що передбачають сутінки (сплеск неспання), пов’язані із синаптичною передачею. Коли миші були тимчасово позбавлені сну, трансляція білків, залучених до синаптичної передачі сигналів, залишалася ритмічною, тоді як гени, пов’язані з метаболізмом, були пригнічені. Депривація сну скасувала майже всі цикли фосфорилювання в синаптоневросомах. Автори дійшли висновку, що циркадний годинник безпосередньо регулює транскрипцію мережі генів, залучених до синаптичної передачі, і опосередковано регулює трансляцію через поведінковий стан. Таким чином, можна очікувати, що порушення циклу сну/неспання, як це спостерігається при NDD, порушить часову схему електричної активності та синаптичної передачі, що спостерігається в кортикальних ланцюгах, і змінить передачу неправильно згорнутих білків.
Запалення
Імунна система складається з різноманітної мережі клітин, тканин і органів (наприклад, білі кров’яні тільця, селезінка, тимус і кістковий мозок), які пов’язані між собою функціями та синхронізовані в часі. Тимчасова структура імунної функції є загальною ознакою, при цьому циркадна система керує більш активованою імунною системою, коли організм не спить, і послаблює її під час сну (124, 125). У периферичних органах наше розуміння молекулярних взаємодій між циркадним годинником та імунною системою є досить розвиненим. Наприклад, легеневі запальні реакції, яким приділялося стільки уваги під час COVID-19, знаходяться під циркадним контролем. Остання робота показала, що REV-ERB є критичним регулятором фіброзу в мезенхімальних клітинах (126). Інші дослідження виявили чіткі докази того, що молекулярний циркадний годинник керує експресією або придушенням імунних генів (127). Крім того, ритмічне ацетилювання або метилювання гістонів регулює транскрипцію запальних генів. Є навіть докази того, що білки циркадного годинника можуть вступати в пряму фізичну взаємодію з компонентами ключових шляхів запалення, такими як члени сімейства білків NF-κB. Цей тісний зв’язок між циркадною ритмічністю та імунною функцією, ймовірно, служить для посилення захисту протягом доби, коли ми перебуваємо у світі, одночасно обмежуючи витрати на надмірну стимуляцію під час сну.
Вважається, що нейрозапалення, яке вимірюється хронічною активацією астроцитів і мікроглії, є основним фактором NDD (128–130). Як і нейрони, астроцити демонструють надійну функцію циркадного годинника (131). Специфічна для мозку делеція BMAL1 послабила гематоенцефалічний бар’єр, спричинивши втрату перицитів, астрогліоз, активацію мікроглії та посилення експресії генів запалення (132–134). Подібним чином мікроглія має функціональні циркадні годинники, і запальна відповідь мікроглії показує циркадні варіації (135, 136). Одним із ключових відкриттів у цій галузі було те, що специфічний для мозку BMAL1 KO призводить до різкої активації мікроглії та дегенерації синапсів (137). Нещодавня робота передбачає, що компонент циркадного годинника REV-ERB є критичним посередником активації мікроглії та нейрозапалення. У мишей делеція Rev-erb викликала спонтанну мікрогліальну активацію в гіпокампі та посилення експресії прозапальних транскриптів, а також вторинний астрогліоз. Первинна мікроглія Rev-erb –/– демонструє прозапальні фенотипи та підвищену базальну активацію NF-κB (138). Добові ритми мікрогліального синаптичного фагоцитозу, очевидно, обумовлені експресією Rev-erb. Таким чином, руйнування астроцитів і мікроглії, викликане NDD, забезпечує механізм, за допомогою якого циркадні руйнування спричиняють запалення в мозку.
Майбутня робота
Як описано вище, є чіткі докази того, що пацієнти з NDD демонструють порушення циклу сну/неспання та що втрата функцій циркадної системи, ймовірно, сприяє появі цих симптомів. Моделі миші та дрозофіли повторюють циркадні дисфункції, які спостерігаються у пацієнтів, і пропонують можливість для механістичних досліджень. Втручання, засновані на добовому режимі, є критичним випробуванням гіпотези про те, що порушення циркадного режиму є невід’ємним компонентом захворювання (139–141). Як мінімум, ми сподіваємося, що зможемо протидіяти погіршенню циклу сну/неспання. Найбільш оптимістично, ми могли б навіть відстрочити появу симптомів, покращивши циркадіанну регуляцію протеостазу або зменшивши запалення. Звичайно, можна покращити якість життя пацієнтів із НДЗ, не змінюючи основної патології захворювання. Особливою проблемою в цій популяції є високий ступінь варіабельності змін циркадної системи. Ця робота знаходиться на початку (142), оскільки ми все ще розробляємо механізми взаємодії між циркадним часом і патологією NDD. Тим не менш, своєчасне лікування світлом, годуванням і фізичними вправами потенційно пропонує недорогі способи боротьби з NDD. Враховуючи неоднорідність симптомів, які відчувають пацієнти, ключ до успіху, ймовірно, полягає в стратифікації суб’єктів клінічних випробувань, щоб зосередитися на тих, хто, швидше за все, отримає користь від конкретного лікування.

Наприклад, з нашим кращим розумінням ролі меланопсину в шляху надходження світла світлові втручання, які посилюють стимуляцію меланопсину вдень і мінімізують його вночі, є дуже перспективними. Цей тип динамічного освітлення може покращити нічний сон і зменшити депресію та збудження у пацієнтів із деменцією, які живуть у контрольованому середовищі (143). Це дослідження було зосереджено на підгрупі літніх пацієнтів, у яких спостерігалися порушення сну. У майбутніх роботах PIPR можна використовувати як екран для виключення суб’єктів із порушеним циркадним виявленням світла. Подібним чином застосування фармакологічних агентів, які маніпулюють мелатоніном, гістаміном, орексином або глюкокортикоїдними сигналами, пропонує способи отримати більше користі від уже створених ліків. Ймовірно, час дозування можна оптимізувати для максимізації терапевтичного індексу (144–146). Наприклад, нічне лікування препаратом, що підвищує рівень гістаміну, покращило кілька поведінкових показників у моделі миші HD (147). Нарешті, є нові класи фармакологічних агентів, які безпосередньо впливають на систему циркадного часу. Наприклад, незважаючи на те, що потрібно ще багато роботи, невеликі молекули, що покращують годинник, такі як нобілетин, цитрусовий флавоноїд, були запропоновані як лікування NDD (148, 149). Крім того, повідомлялося, що агоністи REV-ERB посилюють неспання та зменшують сон, а також поведінку, подібну до тривоги, у мишей (150, 151). Щоб реалістично говорити про циркадіанну медицину (4), нам потрібен набір робочих інструментів, які ми можемо застосувати для лікування низькоамплітудних, фрагментованих, нерегулярних ритмів, які ми спостерігаємо у багатьох пацієнтів з NDD.
Адреса для листування: Крістофер С. Колвелл, Департамент психіатрії та біоповедінкових наук, Центр дослідження проблем інтелектуального та розвитку, Медична школа Девіда Геффена, UCLA, 760 Westwood Plaza, Лос-Анджелес, Каліфорнія 90095, США. Електронна адреса: ccolwell@mednet.ucla.edu.
For more information:1950477648nn@gmail.com